



MicroRNA-326-5p protege neuronas en ictus: Suprimir STAT3 reduce apoptosis y daño mitocondrial
Resumen
Los estudios han explorado ampliamente el papel de los microARN (miARN) en la lesión por isquemia/reperfusión cerebral (I/R). Sin embargo, el mecanismo específico de miR-326-5p en I/R cerebral sigue siendo elusivo. Por tanto, este estudio tuvo como objetivo desvelar el mecanismo del eje miR-326-5p/transductor de señal y activador de transcripción-3 (STAT3) en I/R cerebral. Se establecieron dos modelos (privación de oxígeno y glucosa [OGD] en neuronas corticales primarias de rata y oclusión de la arteria cerebral media [MCAO] en ratas Sprague-Dawley) para imitar I/R cerebral in vitro e in vivo, respectivamente. Se realizaron ensayos de pérdida y ganancia de función con neuronas tratadas con OGD y ratas MCAO. Posteriormente, se evaluaron viabilidad, apoptosis, estrés oxidativo y potencial de membrana mitocondrial en neuronas tratadas con OGD, así como cambios patológicos, apoptosis y potencial de membrana mitocondrial en tejidos cerebrales de ratas MCAO. Se detectó la expresión de Mitofusina-2 (Mfn2), miR-326-5p y STAT3 en neuronas tratadas con OGD y en tejidos cerebrales de ratas MCAO. Mfn2 y miR-326-5p se redujeron, y STAT3 se elevó en neuronas tratadas con OGD y tejidos cerebrales de ratas MCAO. miR-326-5p dirigió y reguló negativamente la expresión de STAT3. Restaurar miR-326-5p o reducir STAT3 reforzó la viabilidad, inhibió la apoptosis y el estrés oxidativo, aumentó el potencial de membrana mitocondrial y aumentó la expresión de Mfn2 en neuronas tratadas con OGD. La up-regulación de miR-326-5p o down-regulación de STAT3 alivió los cambios patológicos, inhibió la apoptosis y elevó el potencial de membrana mitocondrial y la expresión de Mfn2 en tejidos cerebrales de ratas con MCAO. Este estudio dilucida que la up-regulación de miR-326-5p o down-regulación de STAT3 protege contra I/R cerebral elevando la expresión de Mfn2.
Introducción
La lesión por isquemia/reperfusión cerebral (I/R) es un tipo de lesión cerebral seguida de ictus isquémico [1]. La característica más característica de la I/R cerebral es la isquemia cerebral transitoria inicial seguida de reperfusión [2]. La I/R cerebral activa la apoptosis neuronal y conduce a daño hipocampal y cortical [3]. Actualmente, la aplicación clínica más común es la trombólisis para I/R [4]. Sin embargo, la reperfusión aumentaría la producción de especies reactivas de oxígeno (ROS), llevando a daño intracelular de ADN, daño relacionado con estrés oxidativo, oxidación de proteínas y peroxidación lipídica, deteriorando aún más la barrera hematoencefálica y el edema [5]. Así, la urgencia de buscar nuevas opciones dirigidas encabeza la prioridad para I/R.
Los microARN (miARN) son ampliamente considerados como roles potenciales y pronósticos en I/R [6, 7]. Por ejemplo, un artículo demostró que miR-202-5p atenúa el daño neuronal y déficits neurológicos, así como el daño celular inducido por privación de oxígeno y glucosa (OGD) en ratas modelo MCAO en lesión isquémica [8]. Además, se encontró que la up-regulación de miR-98 mejora los resultados neurológicos en ratones con I/R [9] y la sobreexpresión de miR-451 alivia la apoptosis cerebral isquémica en ratones con I/R [10]. Específicamente, miR-326-5p tiene capacidad pro-angiogénica para células progenitoras endoteliales y podría mejorar la función cardíaca tras infarto agudo de miocardio [11]. Sin embargo, el estudio centrado en miR-326-5p en I/R está aún en sus inicios. Los transductores de señal y activadores transcripcionales (STAT) son una familia única de proteínas activada por I/R [12]. STAT3 fue predicho como blanco de miR-326-5p en el sitio web de bioinformática; así, estudiamos el papel de STAT3 mediado por miR-326-5p en I/R. STAT3 deteriora los procesos neuroinflamatorios isquémicos y la lesión cerebral secundaria liberando mediadores proinflamatorios [13, 14]. Específicamente, la vía quinasa Janus activada 2 (JAK2)/STAT3 juega un papel funcional en el bloqueo de la apoptosis celular inducida por I/R [15]. La Mitofusina-2 (Mfn2) es un factor de fusión mitocondrial que podría proteger contra I/R cardio-cerebrovascular [16] y mejorar la apoptosis neuronal inducida por hipoxia en daño cerebral isquémico [17]. También se ha registrado que Mfn2 ejerce efecto protector en I/R [18].
En resumen, una investigación menos profunda ha descubierto el papel combinado de miR-326-5p y STAT3 en I/R. Dado esto, este estudio se lanza con la hipótesis de que miR-326-5p atenúa I/R mediante el blanco de STAT3.
Materiales y métodos
Declaración ética
Los experimentos fueron aprobados por el Comité de Cuidado y Uso de Animales del Hospital Afiliado de la Universidad de Yangzhou; Universidad de Yangzhou, y se llevaron a cabo con la Guía para el Cuidado y Uso de Ratas Experimentales del Hospital Afiliado de la Universidad de Yangzhou; Universidad de Yangzhou.
Animales experimentales
Ratas Sprague-Dawley macho adultas (6-8 semanas, 250 ± 30 g) del Centro de Medicina Comparada, Universidad de Yangzhou (Yangzhou, China), se mantuvieron en ambiente libre de patógenos específicos con acceso libre a comida y agua, (24 ± 1)°C, (50 ± 5)% humedad y ciclo 12 h luz/oscuridad.
Aislamiento e identificación celular
Las ratas fueron eutanasiadas por decapitación, y sus cerebros se cortaron en 1 mm³ para configurar suspensiones celulares, que se mezclaron con solución de azul de tripano al 0,4% a 9:1 (concentración final de azul de tripano 0,04%) y la densidad celular y tasa de supervivencia se calcularon con un hemocitómetro. Las células (1 × 10⁶ células/mL) se sembraron en un frasco de cultivo pre-recubierto con L-polipolisina (0,1 mg/mL) a 5 × 10⁶ células por frasco. Cuando las células se adhirieron a las paredes, se incubaron con medio renovado (NeurobasalA + B27 + L-glutamina) y se cultivaron continuamente durante 6-7 d cambiando medio a la mitad cada 2-3 d.
Identificación celular: Neuronas corticales de rata se utilizaron para preparar láminas de neuronas que se incubaron con anticuerpo policlonal anti-rat Nestin (NES) de conejo (1:200), así como anticuerpo anti-conejo inmunoglobulina G marcado con isotiocianato de fluoresceína (FITC) de cabra (1:50, ambos de Cell Signaling Technology, Beverly, MA, EE. UU.). Posteriormente, las células se sellaron con un antienvejecedor fluorescente y se observaron por microscopía de fluorescencia.
Establecimiento del modelo OGD
Las neuronas se cultivaron en solución de Earle libre de glucosa y se expusieron a una mezcla de gas de 95% N₂ y 5% CO₂. Tras 30 min de ventilación de presión positiva, se formó un ambiente hipóxico en el que se incubaron las células (simulación de isquemia por OGD in vitro). Tras 90 min de incubación, las células se incubaron con medio de mantenimiento celular tras retirar la solución de Earle libre de glucosa. Las células se cultivaron rutinariamente para experimentos subsiguientes (simulación de reperfusión por reperfusión oxígeno-glucosa in vitro). El medio normal bajo normoxia sirvió como control.
Las neuronas se dividieron en grupo control; grupo OGD, grupo control negativo (NC) (neuronas tratadas con OGD transfectadas con oligonucleótidos scramble), grupo agomir miR-326-5p (neuronas tratadas con OGD transfectadas con agomir miR-326-5p), grupo sh-STAT3 (neuronas tratadas con OGD transfectadas con shRNA STAT3) y grupo agomir miR-326-5p + sobreexpresión (oe)-STAT3 (neuronas tratadas con OGD transfectadas con agomir miR-326-5p y vector pcDNA-STAT3). oligonucleótidos y vectores fueron proporcionados por GenePharma (Shanghai, China).
Usando lipofectamina 2000 (Invitrogen; Thermo Fisher Scientific), oligonucleótidos scramble, agomir miR-326-5p, shRNA STAT3 o agomir miR-326-5p y pcDNA-STAT3 se transfirieron a neuronas primarias de rata y la eficacia de transfección se probó por RT-qPCR o Western blot tras 48 h.
Ensayo MTT
Las neuronas se prepararon en suspensión a 1 × 10⁶ células/mL y se cultivaron durante 0, 24 y 48 h, respectivamente. En ambiente estéril, las neuronas se incubaron durante 2-4 h en solución MTT al 10% y se añadieron 150 µL de solución disuelta de Formanzan (Dimetilsulfóxido) hasta que el cristal se disolvió suficientemente. El valor de densidad óptica (DO) se midió en un lector de microplacas a 570 nm.
Ensayo de apoptosis por citometría de flujo
Las neuronas se desprendieron con tripsina al 0,25%, centrifugaron a 2000 rpm y resuspendieron en PBS. Luego, las neuronas se centrifugaron a 2000 rpm, y el pellet se resuspendió en buffer de unión e incubaron sucesivamente con 5 µL Annexin V-FITC y 5 µL yoduro de propidio (PI). Se aplicó un citómetro de flujo para detectar tasa de apoptosis.
Detección de potencial de membrana mitocondrial JC-1
Las células en placa de 6 pocillos se lavaron con PBS, se añadieron 1 mL medio de cultivo celular y 1 mL solución de trabajo de tinción JC-1 (50 µL JC-1, 8 mL agua ultrapura y 2 mL buffer de tinción JC-1) (SolarbioScience, Beijing, China) e incubaron 15 min. El buffer de tinción JC-1 1× se configuró con 4 mL agua destilada y 1 mL buffer de tinción JC-1. Tras incubación, las tripsinizaron, resuspendieron en buffer JC-1 y se probaron en citómetro de flujo. Se calculó la proporción relativa de fluorescencia verde.
Detección de estrés oxidativo
Los niveles intracelulares de ROS se midieron con Kit de Detección 2,7-diclorofluoresceína diacetato (DCF-DA) (Abcam). En breve, las neuronas se desprendieron con tripsina al 0,25%, resuspendieron e incubaron con 10 µM DCF-DA durante 30 min. Después, la fluorescencia DCF con luz de excitación/emisión a 495 nm/529 nm se midió por espectroscopía de fluorescencia (BD Biosciences).
La detección de contenido intracelular de malondialdehído (MDA), glutatión (GSH) y actividad de superóxido dismutasa (SOD) se realizó por colorimetría química usando kits de ensayo comerciales (Beyotime Biotechnology Co., Shanghai, China). El valor DO se midió por lector de microplacas.
Establecimiento del modelo de rata
Las ratas fueron anestesiadas por inyección intraperitoneal de pentobarbital sódico (50 µg/kg). Se hizo una incisión media en el cuello, se ligó la carótida externa y se bloqueó la carótida común con clip arterial. Una sutura de nailon monofilamento recubierta de silicona 3-0 se insertó cuidadosamente en la carótida interna hasta resistencia ligera. Tras 90 min de isquemia cerebral transitoria, se retiró la sutura y se realizó reperfusión durante otras 24 h. El grupo sham recibió el mismo tratamiento, excepto que la sutura no entró en la carótida interna. Durante la operación, se usó una cama termostática para mantener la temperatura rectal a 37 ± 0,5 °C [19].
Las ratas se asignaron a 6 grupos (n = 6) e inyectaron con plásmido o miARN en ventriculocistern lateral antes del establecimiento de modelos MCAO, incluyendo grupo sham, grupo MCAO (ratas modeladas), grupo NC (ratas modeladas con inyección ventriculocistern lateral de 5 µL oligonucleótidos scramble [100 µM]), grupo agomir miR-326-5p (ratas modeladas con inyección ventriculocistern lateral de 5 µL agomir miR-326-5p [100 µM]), grupo sh-STAT3 (ratas modeladas con inyección ventriculocistern lateral de 5 µL vector interferencia STAT3 [100 µM]) y grupo agomir miR-326-5p + oe-STAT3 (ratas modeladas con inyección ventriculocistern lateral de 5 µL agomir miR-326-5p [100 µM] y 5 µL vector sobreexpresión STAT3 [100 µM]) [20, 21].
Recolección de especímenes
Las ratas fueron eutanasiadas por anestesia, los corazones se perfundieron y se obtuvieron los cerebros completos. Los tejidos cerebrales lesionados se cortaron en masas de tejido de 1 × 1 × 1 mm³ para preparación de secciones de parafina, RT-qPCR, análisis Western blot y detección de potencial de membrana mitocondrial.
Detección de potencial de membrana mitocondrial en corteza cerebral
La corteza cerebral de ratas SD se separó y cortó en 1 mm³. Los bloques de tejido se colocaron en una malla de nylon de 300 mallas y se añadió PBS. Luego, la suspensión celular se centrifugó a 1000 r/min, se añadió etanol al 70% y se centrifugó a 1000 r/min de nuevo. Después, la muestra se resuspendió en 1 mL PBS, y la suspensión (1 × 10⁶ células, 100 µL) reaccionó con solución de tinte Rodamina123 (10 µL, 5 µg/mL) y se analizó en citómetro de flujo a 488 nm.
Tinción HE
El tejido cerebral de rata se sumergió en paraformaldehído al 4% durante 24 h, y se prepararon secciones de parafina, cortadas en 4 µm, extendidas en agua a 40 °C y horneadas a 60 °C. Rutinariamente desparafinadas e hidratadas, las secciones de parafina se tiñeron con solución de tinción HE. Tras tinción HE, las neuronas dañadas mostraron contracción del núcleo, edema celular, vacuolización y núcleos oscurecidos. El microscopio óptico (Nikon, Japón) se usó para obtener la imagen, y se contó el número de neuronas supervivientes (mm²) de la corteza isquémica.
Tinción TUNEL
Las secciones de parafina se desparafinaron y deshidrataron con alcohol 100%, 95%, 80% y 70%. Luego, las secciones se sumergieron en paraformaldehído al 4% seguido de incubación con buffer citrato de Triton X-100 al 0,1% durante 20 min y mezcla de reacción TUNEL durante 1-1,5 h. Luego, las secciones se revelaron con solución de peroxidasa y diaminobenzidina (DAB), contratiñeron con hematoxilina, deshidrataron por alcohol gradiente, permeabilizaron y sellaron en goma neutra. Las secciones se observaron bajo microscopio óptico para contar células TUNEL-positivas. Partículas amarillentas en el núcleo se definieron como células TUNEL-positivas (células apoptóticas).
Inmunohistoquímica
Las secciones se desparafinaron, hidrataron y recuperaron con antígeno citrato, y la catalasa endógena se bloqueó con H₂O₂ al 3%. Cada sección se añadió suero de cabra (50 µL), incubó con anticuerpo primario (50 µL) y reaccionó con anticuerpo secundario (50 µL) y estreptavidina marcada con peroxidasa de rábano (50 µL). Las secciones se revelaron con DAB y contratiñeron con hematoxilina, seguido de deshidratación por alcohol gradiente, permeabilización con xileno y sellado con goma neutra. Las secciones se observaron por microscopio (citoplasma o núcleo de tejidos cerebrales isquémicos era partículas amarillas o amarillentas). Los valores DO se midieron y promediaron.
RT-qPCR
La extracción total de ARN de tejidos y células se realizó con Trizol (Invitrogen). La expresión de ARNm se analizó mediante qPCR usando SYBR Green PCR Mix (Applied Biosystems, CA, EE. UU.) y sistema PCR en tiempo real QuantStudio TM 6Flex (Applied Biosystems). Se diseñaron primers de transcripción reversa stem-loop específicos y primers forward/reverse (BioTNT, Shanghai, China) para analizar niveles de miARN. La Tabla 1 lista todos los primers. Se adoptó el método 2-ΔΔCT para calcular niveles de miARN o ARNm.
Análisis Western Blot
Las muestras de proteína se separaron por electroforesis en gel de poliacrilamida con dodecilsulfato sódico al 10% y se transfirieron a membrana de fluoruro de polivinilideno (PVDF). Luego, la membrana PVDF se bloqueó con leche descremada al 5% en salino con Tris, se sondeó con anticuerpos primarios y se re-sondeó con anticuerpo secundario durante 2 h. Luego, las bandas de proteína se analizaron con buffer de fosfatasa alcalina conteniendo cloruro de nitroazul tetrazolio y 5-Bromo-4-Cloro-3-Indolil Fosfato y se cuantificaron con software ImageJ (NIH, Bethesda, MD, EE. UU.). Los anticuerpos principales fueron STAT3 (1:1000), Mfn2 (1:1000, Abcam, MA, EE. UU.) y gliceraldehído-3-fosfato deshidrogenasa (GAPDH) (1:1000, Cell Signaling Technology, Beverly, MA, EE. UU.).
Ensayo de gen reportero luciferasa dual
El 3'UTR de STAT3 conteniendo sitios de unión salvaje (WT) o mutante (Mut) de miR-326-5p se clonó en vector pmirGLO (Promega, WI, EE. UU.), nombrado como STAT3-WT y STAT3-Mut. Las células se sembraron en placa de 24 pocillos a 2 × 10⁴ células/pocillo y co-transfectaron con 100 ng de vector luciferasa STAT3-WT o STAT3-Mut y 50 nM agomir miR-326-5p o su agomir NC al 70% de confluencia. La actividad luciferasa se midió usando Sistema de Ensayo Reportero Lucierasa Dual (Promega Corporation, WI, EE. UU.).
Análisis estadístico
El software estadístico SPSS 21.0 (IBM, NY, EE. UU.) se usó para análisis de datos. Los datos se expresaron como media ± desviación estándar (DE). La diferencia entre dos grupos se analizó por prueba t de Student, mientras que comparaciones múltiples se analizaron por análisis de varianza unidireccional (ANOVA), seguido de prueba post hoc de Tukey. P representó prueba bilateral, y P < 0,05 se consideró significancia estadística.
Resultados
La up-regulación de miR-326-5p o down-regulación de STAT3 atenúa la apoptosis de neuronas corticales tratadas con OGD
Cultivadas durante una semana, las neuronas corticales de rata se diferenciaron y maduraron. Microscópicamente, las neuronas mostraron cuerpos neuronales más grandes, citoplasma más transparente, núcleo grande con baja densidad y fuerte índice refractivo. Los cuerpos neuronales eran cónicos o redondos, y las dendritas estaban escalonadas y adheridas a las paredes (Fig. 1a, b). NES fue un marcador químico específico de neuronas cerebrales para localizar neuronas con alta especificidad mediante ensayo de inmunofluorescencia. Se encontró que las neuronas se unían específicamente a NES y mostraban fluorescencia verde (Fig. 1c).
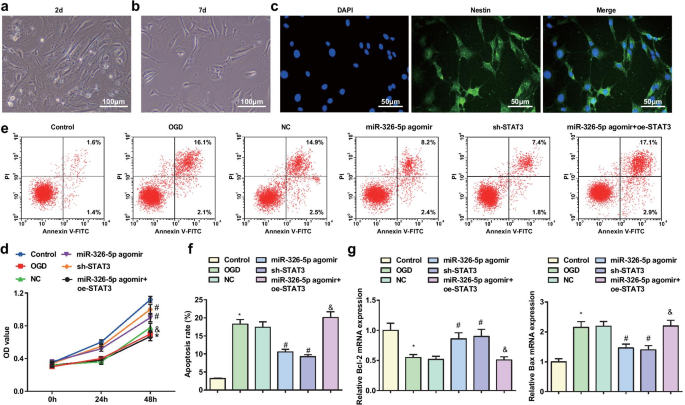
El ensayo MTT se aplicó para detectar viabilidad de neuronas corticales (Fig. 1d). Los resultados demostraron que la viabilidad de neuronas corticales de rata se deterioró en grupo OGD y grupo agomir miR-326-5p + oe-STAT3 versus grupo control y grupo agomir miR-326-5p, pero se mejoró en grupo agomir miR-326-5p y grupo sh-STAT3 versus grupo NC (todos P < 0,05).
La apoptosis de neuronas corticales de rata se determinó por citometría de flujo, mientras la expresión ARNm Bcl-2 y Bax por RT-qPCR (Fig. 1e-g). Los resultados explicaron que en comparación con grupo control y grupo agomir miR-326-5p, el grupo OGD y grupo agomir miR-326-5p + oe-STAT3 demostraron tasa de apoptosis aumentada, expresión Bcl-2 reducida y expresión Bax aumentada (todos P < 0,05). Con los grupos NC por contraste, la tasa de apoptosis se redujo, nivel Bcl-2 se elevó y nivel Bax se suprimió en grupo agomir miR-326-5p y grupo sh-STAT3 (todos P < 0,05).
La up-regulación de miR-326-5p o down-regulación de STAT3 aumenta Mfn2 y potencial de membrana mitocondrial en neuronas corticales tras lesión OGD
La expresión de Mfn2 en neuronas corticales tratadas con OGD se detectó por análisis Western blot (Fig. 2a, b). Respecto al grupo control y grupo agomir miR-326-5p, la expresión proteica Mfn2 redujo en grupo OGD y grupo agomir miR-326-5p + oe-STAT3, mientras aumentó en grupo agomir miR-326-5p y grupo sh-STAT3 versus grupo NC (todos P < 0,05).
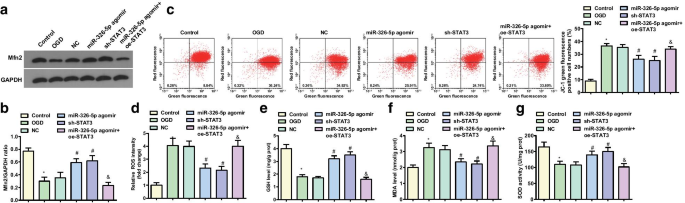
El potencial de membrana mitocondrial detectado por JC-1 encontró que (Fig. 2c, d) respecto al grupo control y grupo agomir miR-326-5p, el nivel de potencial de membrana mitocondrial disminuyó en grupo OGD y grupo agomir miR-326-5p + oe-STAT3 (todos P < 0,05). Relativo a grupos NC, el nivel de potencial de membrana mitocondrial aumentó en grupo agomir miR-326-5p y grupo sh-STAT3 (todos P < 0,05).
Los contenidos de ROS y MDA, y actividades de GSH y SOD en neuronas corticales tratadas con OGD se determinaron y los resultados indicaron que versus grupo control y grupo agomir miR-326-5p, el grupo OGD y grupo agomir miR-326-5p + oe-STAT3 presentaron contenidos ROS y MDA aumentados y actividades GSH y SOD deterioradas (todos P < 0,05). En comparación con grupos NC, el grupo agomir miR-326-5p y grupo sh-STAT3 mostraron contenidos ROS y MDA reducidos y actividades GSH y SOD reforzadas (todos P < 0,05) (Fig. 2e-g).
La up-regulación de miR-326-5p o down-regulación de STAT3 impede daño patológico de neuronas corticales e inhibe apoptosis en ratas con I/R
La tinción HE se adoptó para observar el daño patológico de tejidos cerebrales (Fig. 3a, b), mostrando que en grupo sham, las neuronas eran normales en estructura y ordenadamente dispuestas con citoplasma rojo pálido, núcleo azul y nucleolo claro. En grupo MCAO, grupo NC y grupo agomir miR-326-5p + oe-STAT3, excepto necrosis, se observó que las neuronas estaban desordenadamente dispuestas y teñidas más oscuras, con ruptura de membrana nuclear, desaparición de estructura celular, cariopícnosis, núcleo profundamente teñido y lisis en gran cantidad. En grupo agomir miR-326-5p y grupo sh-STAT3, la hinchazón neuronal se alivió y las neuronas se dispusieron ordenadamente, y las células necróticas se redujeron, indicando mejor estado respecto a grupo MCAO y grupo NC.
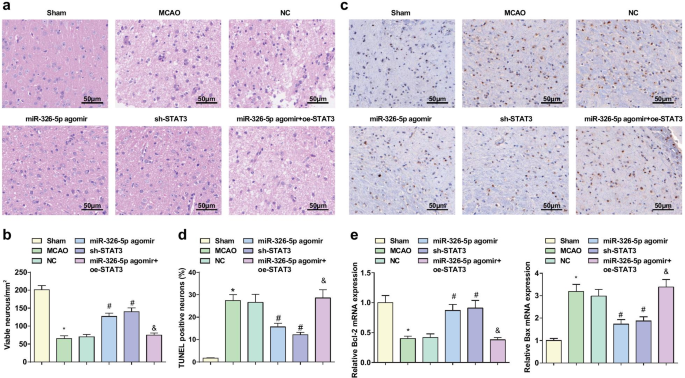
La tinción TUNEL se utilizó para detección de apoptosis neuronal y RT-qPCR para expresión ARNm Bcl-2 y Bax en tejidos cerebrales. Los resultados mostraron que (Fig. 3c-e) en comparación con grupo sham y grupo agomir miR-326-5p, la tasa TUNEL-positiva aumentó, expresión ARNm Bcl-2 disminuyó y expresión ARNm Bax aumentó en grupo MCAO y grupo agomir miR-326-5p + oe-STAT3 (todos P < 0,05). Menor tasa TUNEL-positiva y expresión ARNm Bax, y mayor expresión ARNm Bcl-2 mostraron en grupo agomir miR-326-5p y grupo sh-STAT3 que grupo NC (todos P < 0,05).
La up-regulación de miR-326-5p o down-regulación de STAT3 aumenta potencial de membrana mitocondrial en tejidos cerebrales en ratas con I/R
La detección de expresión proteica Mfn2 en tejido cerebral de rata se realizó por inmunohistoquímica, y los resultados mostraron que (Fig. 4a, b) menor expresión proteica Mfn2 se detectó en grupo sham y grupo agomir miR-326-5p versus grupo MCAO y grupo agomir miR-326-5p + oe-STAT3, mientras mayor expresión proteica Mfn2 se midió en grupo agomir miR-326-5p y grupo sh-STAT3 en lugar de grupo NC (todos P < 0,05).
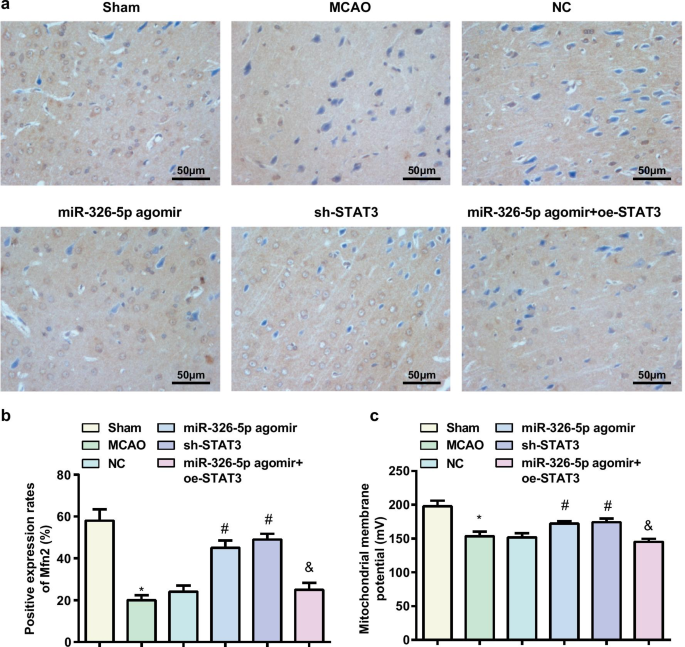
La detección de nivel de potencial de membrana mitocondrial descubrió que (Fig. 4c) por comparación con grupo sham y grupo agomir miR-326-5p, el nivel de potencial de membrana mitocondrial disminuyó en grupo MCAO y grupo agomir miR-326-5p + oe-STAT3, mientras aumentó en grupo agomir miR-326-5p y grupo sh-STAT3 en contraste con grupo NC (todos P < 0,05).
miR-326-5p dirige a STAT3
La expresión de miR-326-5p y STAT3 en neuronas corticales y tejidos cerebrales se detectó por RT-qPCR y análisis Western blot. En neuronas corticales in vitro, se sugirió una disminución en la expresión de miR-326-5p y un aumento en la expresión de STAT3 en grupo OGD respecto al grupo control (ambos P < 0,05). Respecto al grupo NC, la expresión miR-326-5p se elevó y la expresión STAT3 se redujo en grupo agomir miR-326-5p (ambos P < 0,05); la expresión STAT3 disminuyó (P < 0,05) en grupo sh-STAT3. Por contraste con grupo agomir miR-326-5p, la expresión STAT3 se elevó en grupo agomir miR-326-5p + oe-STAT3 (P < 0,05) (Fig. 5a-c).
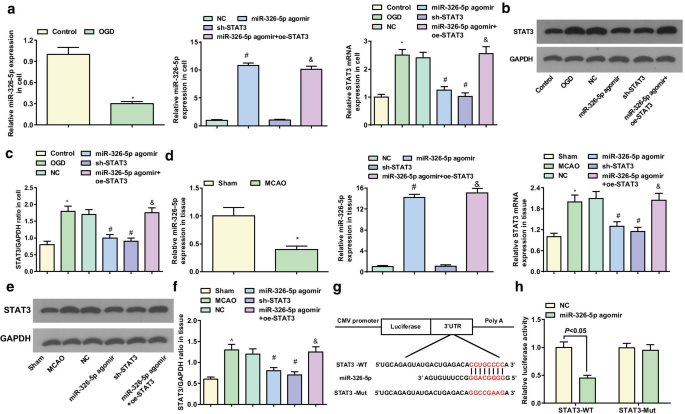
En tejidos cerebrales in vivo, en relación al grupo sham, menor miR-326-5p y mayor STAT3 aparecieron en grupo MCAO (ambos P < 0,05). Relativo al grupo NC, la expresión miR-326-5p subió mientras la expresión STAT3 disminuyó en grupo agomir miR-326-5p (ambos P < 0,05). La expresión STAT3 disminuyó en grupo sh-STAT3 (P < 0,05). Con el grupo agomir miR-326-5p por contraste, la expresión STAT3 se elevó en grupo agomir miR-326-5p + oe-STAT3 (P < 0,05) (Fig. 5d-f).
Los sitios potenciales de diana de miR-326-5p en 3'UTR de STAT3 se encontraron con software DIANA y miRDB (Fig. 5g). El 3'UTR de STAT3 conteniendo sitio de unión WT de miR-326-5p y sitio Mut se construyeron e insertaron en plásmido pmirGLO. La unión de miR-326-5p a 3'UTR de STAT3 se validó adicionalmente por ensayo reportero luciferasa. El ensayo reportero luciferasa reveló que agomir miR-326-5p redujo la actividad luciferasa relativa de STAT3-WT, pero no STAT3-Mut (Fig. 5h), implicando que STAT3 era un gen diana directo de miR-326-5p.
Discusión
La I/R es la causa principal de muerte cerebrovascular [22]. Los miARN están indicados en I/R [23]. Sin embargo, la comprensión integral del mecanismo relacionado con miR-326-5p sigue siendo insuficiente en I/R. Así, este estudio se dirige a desenterrar los roles concretos de miR-326-5p en I/R con énfasis en lo recíproco combinado de miR-326-5p y STAT3. Productivamente, este estudio ha declarado que la up-regulación de miR-326-5p atenuó I/R y elevó expresión Mfn2 vía inhibición STAT3.
Al principio, la expresión miR-326-5p se determinó reducida en I/R in vivo e in vitro. Posteriormente, organizamos una serie de ensayos y encontramos que up-regular miR-326-5p mejoró viabilidad neuronal y función mitocondrial, elevó expresión Mfn2 y restringió estrés oxidativo y apoptosis. Además, experimentos in vivo en ratas verificaron further los roles funcionales de miR-326-5p restaurado en I/R. De hecho, alto miR-326 se prueba correlacionar con supervivencia global larga de pacientes con glioblastoma, el tipo común de tumor cerebral [24]. También, la expresión miR-326 se ha evidenciado reducida en enfermedad de Parkinson y miR-326 podría suprimir apoptosis de neuronas dopaminérgicas y reducir respuesta inflamatoria [25]. Excepto eso, la reducción en miR-326-5p se manifiesta en células progenitoras endoteliales en el curso de infarto miocárdico, e introducción de células progenitoras endoteliales sobreexpresando podría promover recuperación función cardíaca [11]. Ha habido un estudio ilustrando que up-regulación de miR-326 mejora función conductual, mejora viabilidad neuronal y deprime apoptosis neuronal en ratones con enfermedad de Alzheimer [26]. Además, está documentado que up-regulación de miR-326 por mimético miR-326 podría suprimir sintasa óxido nítrico inducible en neuronas dopaminérgicas en enfermedad de Parkinson [27].
En este estudio, encontramos que STAT3 era gen diana de miR-326-5p. Apoyado por estudio avanzado, se indica que expresión STAT3 es regulada negativamente por miR-326 en células madre carcinoma endometrial humano [28]. En el presente estudio, medimos que expresión STAT3 se incrementó en I/R. Actualmente, se ha encontrado que lesión I/R y OGD inducirían expresión STAT3 a aumentar [29]. Intrigantemente, expresión ARNm STAT3 tiende a incremento en animales I/R [30]. Adicionalmente, expresión proteica STAT3 se reporta up-regulada en I/R [31]. Luego, nuestro estudio reveló que down-regular STAT3 tuvo efectos terapéuticos en ratas I/R y neuronas tratadas OGD. Como apoyado por estudio, se concluye que inducción miR-31 desalienta estrés oxidativo por inactivación vía JAK/STAT3 en ictus isquémico [32]. También, inhibición vía JAK2/STAT3 es benéfica para deterioro estrés oxidativo en I/R [31]. Además, knockdown vía JAK/STAT3 se identifica para mejorar viabilidad celular, reducir estrés oxidativo y apoptosis neuronal en lesión cerebral isquémica [33]. Recientemente, vía señalización JAK/STAT3 inhibida es testigo para aliviar infarto miocárdico en lesión I/R miocárdico [34]. Como demostrado, STAT3 depletado socava apoptosis neuronal en ratas con lesión sustancia blanca [35]. Además, supresión apoptosis neuronal y alivio tamaño infarto cerebral se atribuyen a inhibición JAK2/STAT3 en ratas con I/R [36].
Finalmente, nos centramos en efectos de miR-326-5p y STAT3 en expresión Mfn2 y descubrimos que el nivel reducido Mfn2 en ratas con I/R y neuronas tratadas OGD podía elevarse restaurando miR-326-5p o silenciando STAT3. Como implicado por estudio previo, se documenta que Mfn2 disminuye en fase tardía reperfusión y pobre expresión Mfn2 exacerba I/R vía formación autofagosoma restringida y fusión autofagosoma-lisosoma [18]. Adicionalmente, Mfn2 se implica reducir incluso desaparecer en lesión I/R en hepatocitos viejos [37]. Sin embargo, pocas investigaciones han discutido mecanismo regulatorio de miR-326-5p y STAT3 para Mfn2.
Conclusión
En general, este estudio ha dilucidado los mecanismos que miR-326-5p elevado inhibe apoptosis neuronal, atenúa daño patológico de neuronas y aumenta expresión Mfn2 vía down-regulación STAT3 en I/R. El estudio puede actualizar el mecanismo potencial de miR-326-5p y STAT3 en I/R. Sin embargo, más estudios son aún necesarios para further desarrollo del mecanismo molecular en I/R.
Disponibilidad de datos y materiales
No aplica.
Abreviaturas
- miARN:
- MicroARNs
- STAT3:
- Transductor de señal y activador de transcripción-3
- OGD:
- Privación de oxígeno y glucosa
- MCAO:
- Oclusión arteria cerebral media
- ROS:
- Especies reactivas de oxígeno
- STAT:
- Transductores de señal y activadores transcripcionales
- Mfn2:
- Mitofusina-2
- FITC:
- Isotiocianato de fluoresceína
- NES:
- Nestina
- NC:
- Control negativo
- Oe:
- Sobreexpresión
- RT-qPCR:
- Reacción en cadena de polimerasa cuantitativa con transcripción reversa
- DO:
- Densidad óptica
- PI:
- Yoduro de propidio
- MDA:
- Malondialdehído
- GSH:
- Glutatión
- SOD:
- Superóxido dismutasa
- DAB:
- Diaminobenzidina
- PVDF:
- Fluoruro de polivinilideno
- WT:
- Tipo salvaje
- Mut:
- Mutante
- DE:
- Desviación estándar
- ANOVA:
- Análisis de varianza unidireccional
Nanomateriales
- Daños por incendio y prevención: Estrategias expertas para proteger vidas y bienes
- Dirigir el eje miR-342-5p/Wnt3a estabiliza placas ateroscleróticas y suprime angiogénesis en ratones ApoE−/−
- Nanopartículas de mPEG cargadas con icariina: protección mejorada contra cardiotoxicidad inducida por LPS en células H9c2
- Nanocompuestos Híbridos Núcleo-Capa Celulosa-POSS-Sílice/Oro: Síntesis Sol-Gel en Un Paso y Propiedades Multifuncionales
- Liposomas PEGilados mejoran la solubilidad, farmacocinética y citotoxicidad en glioma de la bufalina
- Síntesis fácil de SnO₂ mesoporoso tipo orificio de gusano por autoensamblaje inducido por evaporación: sensor de gas etanol superior
- Ajuste de la Función de Trabajo del Grafeno mediante Tamaño, Funcionalización, Defectos y Dopaje: Investigación por Primeros Principios
- Nanopartículas de Doble Dirigimiento Sensibles a Redox Co-entregan Curcumina a Mitocondrias de Tumores CD44-Positivos
- Membrana de alginato sódico-óxido de grafeno sulfonado: Conductividad protónica superior y baja permeabilidad al metanol para celdas de combustible de metanol directo
- Puntos cuánticos de carbono fluorescentes brillantes a partir de jugo de limón: síntesis hidrotérmica y caracterización óptica
- Comportamiento Magnético y Óptico Mejorado en Nanopartículas La0.67Ca0.33MnO3 Dopadas Pr vía Síntesis Sol-Gel