



Ferumoxitol reduce la actividad de MDSC para aliviar la inmunosupresión inducida por LPS en sepsis
Resumen
La inmunosupresión inducida por sepsis se reconoce como una de las principales características responsables de los fallos terapéuticos. Las células supresoras derivadas de mieloides (MDSC), caracterizadas principalmente por sus propiedades supresoras, se han reportado expandidas en sepsis. El ferumoxitol (FMT), un suplemento de hierro aprobado por la FDA, ha mostrado propiedades inmunomoduladoras en tumores. Sin embargo, no está claro si FMT altera las funciones de MDSC para reducir la inmunosupresión en sepsis tardía. Aquí mostramos un efecto inmunomodulador de FMT sobre MDSC para mejorar la inmunosupresión inducida por lipopolisacárido (LPS) en la etapa tardía de sepsis. La separación de células con FMT internalizado y la detección del contenido intracelular de hierro mostraron que las MDSC pueden captar FMT. Bajas dosis de FMT no tuvieron efectos sobre la viabilidad celular de MDSC, pero FMT inhibió la expansión de MDSC in vitro. Además, FMT redujo significativamente los niveles de expresión de Arg-1, S100A8, S100A9 y p47phox, así como la producción de ROS en MDSC. FMT disminuyó el porcentaje de MDSC granulocíticas (G-MDSC) y promovió la diferenciación de MDSC en macrófagos. Asimismo, FMT redujo el reclutamiento de leucocitos y el engrosamiento de la pared alveolar en los pulmones y las áreas de necrosis en el hígado, así como algunos marcadores bioquímicos de disfunción hepática. FMT redujo el porcentaje de G-MDSC y MDSC monocíticas (M-MDSC) en los bazos de ratones sépticos inducidos por LPS. Notablemente, FMT redujo las funciones inmunosupresoras de células T de tanto G-MDSC como M-MDSC. Como era de esperar, FMT también redujo significativamente la expresión génica de Arg-1 y p47phox en células CD11b⁺Gr-1⁺ esplénicas aisladas de ratones desafiados con LPS. Estos datos indican que FMT disminuyó las funciones inmunosupresoras de MDSC al reducir la producción de Arg-1 y ROS, sugiriendo que FMT puede reducir la inmunosupresión a largo plazo en la etapa tardía de sepsis.
Introducción
FMT, un suplemento de hierro aprobado por la Administración de Alimentos y Medicamentos, se ha usado para tratar la anemia por deficiencia de hierro en adultos con enfermedad renal crónica (ERC), y también se emplea ampliamente como agente de contraste y vector de fármacos. Estudios previos mostraron que FMT tenía propiedades inmunomoduladoras, como su capacidad para inducir un cambio fenotípico en macrófagos M2 hacia un subtipo M1 con alto CD86⁺ y TNF-α positivo. Sin embargo, los efectos de FMT en otras células inmunes no se han examinado.
Las MDSC son una población heterogénea de células mieloides inmaduras con una potente capacidad inmunosupresora. En ratones, las MDSC son identificables como células Gr-1⁺CD11b⁺, mientras que las MDSC humanas carecen del homólogo Gr-1 y se definen como células CD14⁻HLA-DR⁻CD11b⁺CD33⁺ o CD14⁺HLA-DR⁻CD11b⁺CD33⁺. Las MDSC constan de dos grandes grupos: MDSC granulocíticas o PMN-MDSC y M-MDSC, y ambas poblaciones tienen funciones inmunosupresoras mediante la producción de iNOS, ROS y Arg-1. La actividad aumentada de Arg-1 agota la L-arginina, y la escasez de L-arginina inhibe la proliferación de células T al disminuir la expresión de la cadena zeta de CD3. El iNOS genera NO, que inhibe las funciones de JAK3 y STAT5 en células T, así como la expresión de MHC II. Los ROS inducen la modificación postraduccional de los receptores de células T y pueden causar falta de respuesta de células T específicas al antígeno. Las M-MDSC surgen de precursores monocíticos y pueden diferenciarse en macrófagos y células dendríticas bajo condiciones de citoquinas apropiadas. La mayor parte de nuestro conocimiento sobre MDSC proviene de estudios de cáncer. En años recientes, una expansión de MDSC también se ha descrito en enfermedades inflamatorias agudas y crónicas, incluyendo inflamación, quemaduras y enfermedades autoinmunes. Recientemente, se reportó un alto nivel de captación de nanopartículas fluorescentes por MDSC en esófago y bazo de ratones en estudios de imagen. Sin embargo, no está claro si FMT altera la función de MDSC involucradas en el desarrollo de enfermedades inflamatorias.
La sepsis, una respuesta inflamatoria desregulada del huésped a una infección grave que puede causar disfunción orgánica potencialmente mortal, es la causa más común de muerte en la unidad de cuidados intensivos. La sepsis inicia una respuesta proinflamatoria abrumadora que, si no se trata tempranamente, se transforma rápidamente en inmunosupresión a largo plazo. La expansión de MDSC se ha descrito en bazos y ganglios linfáticos en modelos animales de sepsis, así como en pacientes con sepsis. La activación de células inmunosupresoras como MDSC es crítica para el control adecuado de la hiperresponsividad del sistema inmune innato, pero su expansión excesiva puede llevar a hiperinmunosupresión, que es la fuerza impulsora predominante para infección secundaria y mortalidad en sepsis tardía. El aumento del número de MDSC se correlaciona con la supresión de la proliferación de linfocitos. Se ha reportado que las MDSC adquieren su fenotipo en la médula ósea y luego migran a órganos linfoides secundarios para inhibir las respuestas de células T y suprimir su proliferación en ratones inmunosuprimidos por LPS. La mayoría de los pacientes con sepsis prolongada exhiben un estado inmunosupresor, y la mayoría de la mortalidad por sepsis se debe a la inmunosupresión en sepsis tardía. La eliminación de MDSC puede tener efectos beneficiosos en sepsis tardía al restaurar la respuesta inmune. Por tanto, planteamos la hipótesis de que FMT puede modular las funciones de MDSC para reducir la inmunosupresión en sepsis tardía.
Aquí mostramos un efecto inmunomodulador de FMT sobre MDSC. Utilizamos las propiedades magnéticas de FMT para revelar que las MDSC eran capaces de fagocitar FMT in vitro. Además, hallamos que FMT atenuó la función inmunosupresora de MDSC mediante la regulación a la baja de Arg-1 y ROS. Además, experimentos in vivo confirmaron que FMT mejoró la etapa tardía de sepsis inducida por LPS en ratones al debilitar la capacidad de MDSC para inhibir células T. Nuestros datos sugieren que la función inmunomoduladora de FMT puede usarse para tratar la inmunosupresión que ocurre en sepsis tardía.
Materiales y métodos
Ratones
Ratones machos C57BL/6 (8-10 semanas) se compraron en el Centro de Investigación de Animales Modelo de la Universidad de Nanjing (Nanjing, China). Los ratones se criaron bajo condiciones libres de patógenos específicos (SPF) en un ciclo de luz/oscuridad de 24 h con acceso libre a comida y agua. Todos los experimentos con ratones fueron aprobados por el Comité Institucional de Cuidado y Uso de Animales de la Universidad de Nanjing.
Tinción de azul de Prusia
La distribución intracelular de FMT se detectó usando el kit de tinción de azul de Prusia de Perl (Solarbio, China) según las instrucciones del fabricante. Brevemente, las células se fijaron en paraformaldehído al 4% durante 15 min, y luego se incubaron con ferrocianuro de potasio al 10% durante 25-30 min, seguido de lavado y contraste con rojo nuclear rápido durante 10 min. Las células que contenían partículas azules en el citoplasma fueron positivas para la tinción de azul de Prusia.
Generación de MDSC derivadas de médula ósea
Las células de médula ósea se obtuvieron lavando fémures y tibias de ratones salvajes seguido de lisis de glóbulos rojos. Las células de médula ósea se cultivaron en medio RPMI-1640 completo con 10% FBS, 1% v/v penicilina y estreptomicina (Gibco, CA), 40 ng/mL factor estimulante de colonias de granulocitos-macrófagos (GM-CSF) (Miltenyi Biotech, Alemania) y 40 ng/mL IL-6 (Miltenyi Biotech, Alemania) a 37 °C en una incubadora con 5% CO₂ durante 4 días. Las células no adherentes se recogieron para experimentos posteriores.
Ensayo de viabilidad celular
La viabilidad celular se analizó usando el kit de conteo celular-8 (Dojindo, Kumamoto, Japón) según las instrucciones del fabricante. Brevemente, MDSC (5 × 10³) se sembraron en placas de cultivo de 96 pocillos e incubaron en atmósfera de 5% CO₂ a 37 °C antes del tratamiento. El medio se reemplazó luego con medio fresco que contenía varias concentraciones de FMT (250, 500, 1000, 2000 μg/mL) durante 24 h. El sobrenadante se descartó posteriormente y se añadió medio fresco que contenía solución CCK-8. Tras incubar a 37 °C durante 3 h, la absorbancia se midió a 450 nm usando un lector de microplacas Gen5 (BioTek, EE. UU.).
Aislamiento de ARN total y PCR en tiempo real
El ARN total se extrajo de las células usando el reactivo TRIzol (Invitrogen, EE. UU.) y se cuantificó con un espectrofotómetro Nanodrop (Thermo Scientific, EE. UU.) antes de ser retrotranscrito usando el kit de síntesis de cDNA de primera hebra HiScript II (Vazyme Biotech Co., Ltd, China) según las instrucciones del fabricante. La PCR cuantitativa en tiempo real se realizó usando el kit PCR SYBR Green (Bio-Rad, Hercules, CA) en un sistema qPCR StepOne-Plus de Applied Biosystems (Applied Biosystems, Forster City, CA). La expresión génica se normalizó a GAPDH usando el método 2−ΔΔCt. Las secuencias de los cebadores se listan en el Archivo adicional 1: Tabla S1.
Citometría de flujo
Los tejidos se prepararon como suspensiones unicelulares con colagenasa tipo D (1 mg/mL) y DNasa I (0.1 mg/mL) en solución salina balanceada de Hanks (HBSS) a 37 °C durante 30 min, y luego se lisaron los glóbulos rojos del bazo. Las suspensiones celulares se filtraron a través de filtros de 70 μm, y los linfocitos se recogieron por centrifugación a 300 g durante 5 min a 4 °C. Tras lavado, las células se prepararon inmediatamente para clasificación activada por fluorescencia. Las células individuales se incubaron con reactivo de bloqueo FcR (Miltenyi Biotech, Alemania) durante 10 min, seguido de tinción con los siguientes conjugados de anticuerpos durante 20 min: anti-CD11b, anti-CD11c, anti-CD4 y anti-CD8 marcados con FITC; anti-Ly6G marcado con PE; anti-Ly6C, anti-CD3, anti-F4/80 y anti-MHC II marcados con APC (BioLegend, CA). Tras lavado, las células se detectaron con un FACS Calibur (BD, CA) y los datos se analizaron usando FlowJo 7.6 (Tree Star, Inc., EE. UU.).
Tinción H&E
Los tejidos de hígado y pulmón se fijaron en formaldehído fosfato al 4%. El tejido fijado se incluyó en parafina, y secciones de 5 μm de espesor se tiñeron con hematoxilina y eosina para microscopía óptica.
Ensayo inmunoabsorbente ligado a enzimas (ELISA)
Los niveles séricos de TNFα, MCP-1 e IL-1β se determinaron usando kits ELISA específicos (Dakewe, China) según las instrucciones del fabricante. Cada muestra se ejecutó en duplicado.
Detección de ROS
El ROS intracelular se midió usando el kit de 2,7-diclorodihidrofluoresceína diacetato (DCFH-DA) (Beyotime, China) según las instrucciones del fabricante. Brevemente, las células se lavaron dos veces con PBS e incubaron con 5 μM DCFH-DA a 37 °C en la oscuridad durante 30 min, luego se lavaron con medio RPMI-1640 y resuspendieron en PBS. Las células se analizaron para fluorescencia verde intracelular usando un citómetro de flujo (BD, CA).
Ensayo de proliferación de células T
Las células T CD3⁺ totales se enriquecieron de los bazos de ratones salvajes usando un kit MicroBead CD3ε (Miltenyi Biotech, Alemania) e incubaron con tinción CFSE (Invitrogen, EE. UU.). Para la proliferación de células T inducida por anticuerpos anti-CD3/CD28, las células T se activaron con anticuerpo anti-CD3 (1 μg/mL) y anticuerpo anti-CD28 (1 μg/mL). G-MDSC (Gr-1highLy-6G⁺) y M-MDSC (Gr-1dimLy-6G⁻) se aislaron de los bazos de ratones tratados con FMT o vehículo usando un kit de aislamiento de células supresoras derivadas de mieloides (Miltenyi Biotech, Alemania) según las instrucciones del fabricante. Las MDSC se cocultivaron a proporción 1:1 con células T CD3⁺ marcadas con CFSE en placas de fondo plano de 96 pocillos durante 3 días. CFSE se divide equitativamente entre las células hijas en cada división; por tanto, la proliferación se determinó por citometría de flujo. La pureza de las células tras la clasificación fue > 90%.
Estadística y análisis de datos
Todas las estadísticas se calcularon usando el software GraphPad Prism 6 (GraphPad Software, CA) y se presentan como medias ± desviaciones estándar (DE). Las diferencias entre dos grupos se analizaron mediante la prueba U de Mann-Whitney o prueba t de Student no pareada de dos colas. ANOVA de un factor se usó para la comparación de múltiples grupos. Todos los experimentos se repitieron al menos tres veces. Las diferencias con valores p < 0.05 se consideraron estadísticamente significativas.
Resultados
Un gran número de MDSC captan FMT
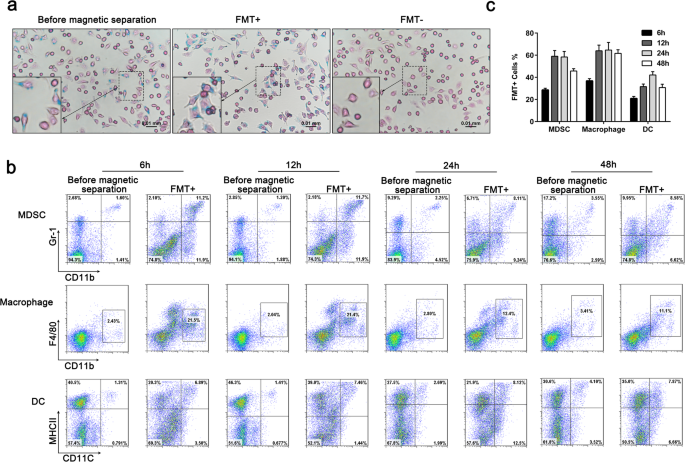
Para verificar si las células con FMT internalizado se separan mediante MicroBeads MACS, usamos tinción de azul de Prusia para detectar el contenido intracelular de hierro en macrófagos tratados con FMT (1000 ng/mL) durante 24 h. Las células se dividieron en tres grupos: antes de la separación magnética, células positivas para FMT seleccionadas magnéticamente (FMT+), y las que no fueron aisladas magnéticamente (FMT-). La tinción de azul de Prusia demostró que la mayoría de las células seleccionadas magnéticamente eran positivas para azul de Prusia (Fig. 1a). Para comparar la capacidad de fagocitar FMT entre MDSC, macrófagos y células dendríticas (DC), aislamos esplenocitos de ratones C57BL/6 naïves tratados con FMT durante 6 h, 12 h, 24 h y 48 h. Los esplenocitos se dividieron en dos subconjuntos: antes de la separación magnética y células positivas para FMT. El análisis citométrico reveló que casi el 60% de MDSC y más del 60% de macrófagos acumularon FMT después de 12-48 h (Fig. 1b, c). Solo aproximadamente el 40% de DC fueron positivas para FMT a las 24 h. Estos datos mostraron que, al igual que los macrófagos, las MDSC pueden captar FMT y sugirieron que FMT puede influir en la función de MDSC.
FMT inhibe la expansión de MDSC in vitro
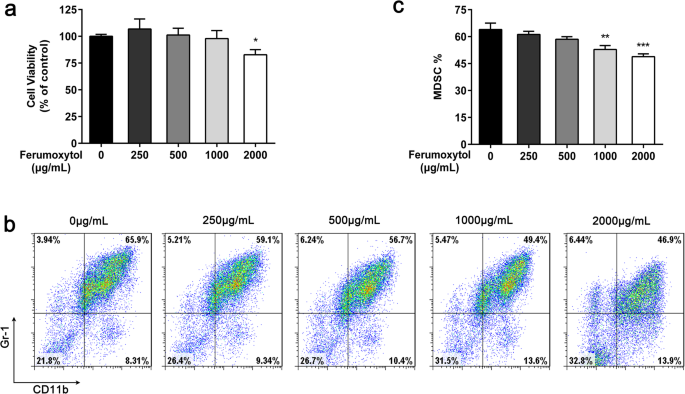
Se ha reportado que FMT induce un cambio fenotípico en macrófagos M2 hacia un subtipo M1 con alto CD86⁺ y TNF-α positivo. Dado que hay un gran número de MDSC que pueden captar FMT, hipotetizamos que FMT puede alterar la función de MDSC. Primero, se evaluaron los efectos citotóxicos de FMT a 250, 500, 1000 y 2000 μg/mL sobre MDSC mediante el ensayo de viabilidad celular CCK8. Los resultados mostraron que FMT no tuvo efecto sobre la viabilidad celular a bajas dosis y solo exhibió citotoxicidad moderada a la dosis máxima de 2000 μg/mL (Fig. 2a). Luego probamos si FMT a diferentes concentraciones afectaría la generación de MDSC. Células de médula ósea aisladas de ratones C57BL/6 naïves se trataron con medio o varias concentraciones de FMT (250, 500, 1000 y 2000 μg/mL) durante 4 días, seguidas de caracterización por citometría de flujo el día 4. GM-CSF e IL-6 se añadieron el día 0. Los resultados de tres experimentos independientes revelaron que FMT a 1000 y 2000 μg/mL disminuyó significativamente la expansión de MDSC (Fig. 2b, c).
FMT reduce la capacidad inmunosupresora de MDSC
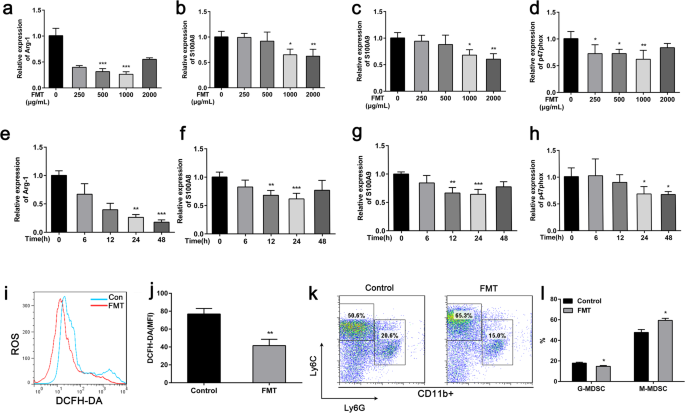
Las MDSC usan varios mecanismos para inhibir la proliferación y función efectora de células T, siendo los mejor descritos la producción de ROS y Arg-1. La expresión del componente p47phox del complejo nicotinamida adenina dinucleótido fosfato-oxidasa (NOX) es responsable de la producción de ROS en MDSC. Se reportó que S100A8/A9 es sintetizada y secretada por MDSC en un bucle inflamatorio autocrino y que esto es importante en la supresión de la función de células dendríticas en modelos murinos. Para determinar si FMT podía alterar la función de MDSC, obtuvimos MDSC derivadas de médula ósea como se describió previamente y usamos RT-PCR para medir la expresión de ARNm en MDSC tratadas con FMT versus controles no tratados. Los resultados revelaron que las MDSC tratadas con FMT redujeron significativamente los niveles de expresión de Arg-1, S100A8, S100A9 y p47phox comparadas con MDSC no tratadas (Fig. 3a-h). A continuación, evaluamos los niveles de ROS en MDSC control y tratadas con FMT. Los resultados revelaron que las MDSC tratadas con FMT mostraron un nivel de ROS significativamente menor que las células control (Fig. 3i, j). Posteriormente, comparamos los cambios en las subpoblaciones de MDSC en los grupos tratados con FMT y no tratados. Los resultados mostraron que FMT disminuyó el porcentaje de G-MDSC, observándose también un ligero aumento en M-MDSC (Fig. 3k, l).
FMT promueve la diferenciación de MDSC en macrófagos
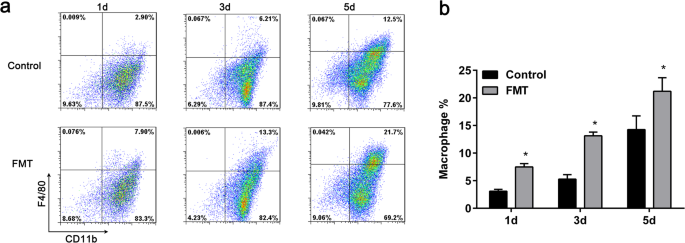
Para determinar si FMT estimula la diferenciación final de MDSC en macrófagos, tratamos células con 1000 μg/mL FMT el día 0 y realizamos citometría de flujo para marcadores asociados a macrófagos CD11b y F4/80 en días 1, 3 y 5. Los resultados mostraron que 1 día después de la adición de 1000 μg/mL FMT, la proporción de macrófagos aumentó significativamente más de 2 veces comparada con células no tratadas. De manera similar, 3 y 5 días después del tratamiento con FMT, las proporciones de macrófagos también aumentaron significativamente (Fig. 4a, b).
FMT alivia los síntomas en ratones sépticos inducidos por LPS
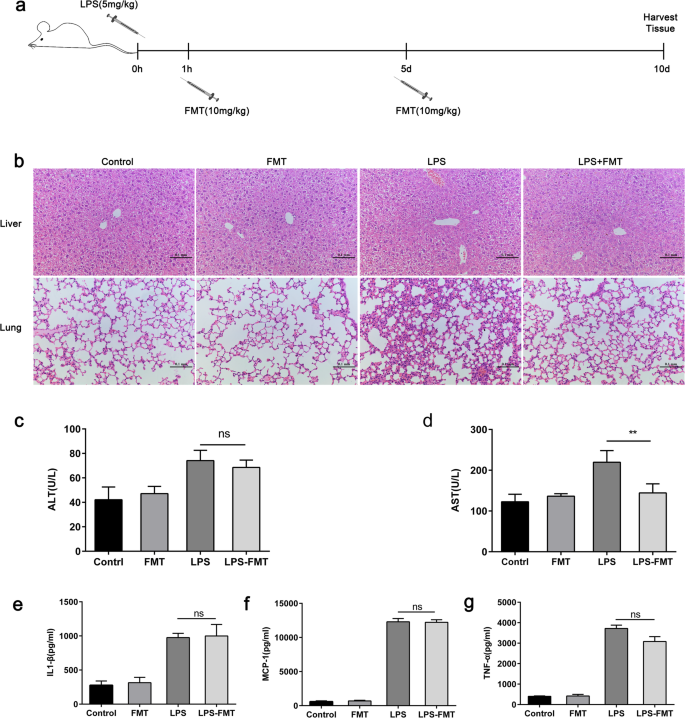
Se ha reportado que la sepsis se asocia con daño tisular y conduce a fallo orgánico y disfunción endotelial. Para investigar si FMT reduce los síntomas de sepsis tardía, se evaluó el extent de daño orgánico en ratones experimentales tras 10 días. Un examen histopatológico de los pulmones en sepsis inducida por LPS indicó que FMT redujo el reclutamiento de leucocitos y el engrosamiento de la pared alveolar comparado con ratones tratados con vehículo. La tinción H&E también reveló que el área de necrosis hepática fue menor en ratones tratados con FMT comparados con los tratados con vehículo (Fig. 5a, b). Además, los niveles séricos de aspartato aminotransferasa, usados como marcador bioquímico de disfunción hepática en estos animales, fueron significativamente menores en hígados de ratones tratados con FMT comparados con el control (Fig. 5c). Sin embargo, FMT no afectó los niveles de alanina aminotransferasa (Fig. 5d). Además, se cree que la sepsis se asocia con resultados adversos como producción elevada de citoquinas inflamatorias; por tanto, evaluamos cambios en los niveles de citoquinas proinflamatorias en suero. El nivel de TNF-α en suero fue ligeramente, pero no significativamente, menor en ratones tratados con FMT a las 3 h tras inyección de LPS, y no se observaron diferencias en niveles de MCP-1 o IL-1β entre ratones tratados con FMT y tratados con vehículo (Fig. 5e-g).
FMT disminuye el número de MDSC en el bazo de ratones sépticos inducidos por LPS
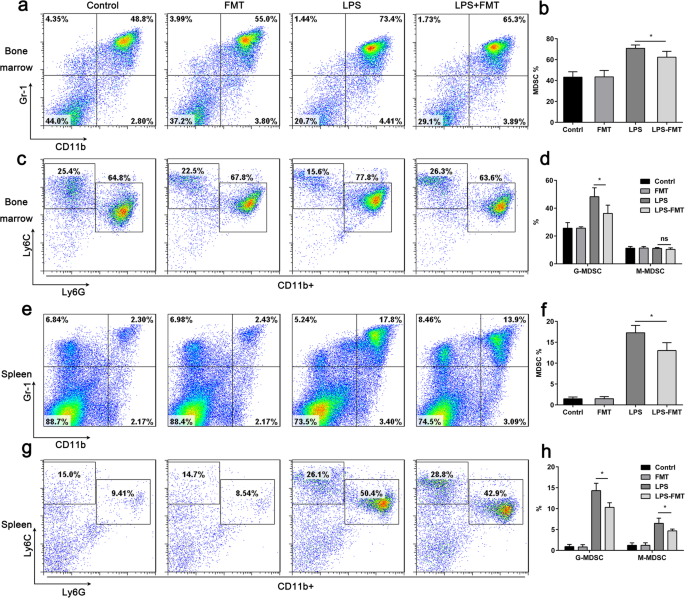
Evidencia creciente respalda que la inmunosupresión asociada a sepsis aumenta la mortalidad, y las MDSC se consideran un componente mayor de la red inmunosupresora. Se ha reportado que G-MDSC se expanden más específicamente en pacientes sépticos y parecen ser actores principales de la inmunosupresión inducida por sepsis. Para determinar si FMT modula las poblaciones de MDSC en ratones salvajes, ratones C57BL/6 recibieron FMT vía vena cola en la hora 1 y día 5. Los resultados mostraron que no se detectaron diferencias significativas en el porcentaje de MDSC en bazo o médula ósea entre ratones control y tratados con FMT (Fig. 6a, e). Notablemente, FMT disminuyó la expansión dependiente de LPS de células CD11b⁺Gr-1⁺ tanto en médula ósea como en bazo (Fig. 6a, e), lo cual es consistente con estudios in vitro. Además, FMT también disminuyó el porcentaje de G-MDSC y M-MDSC en el bazo, mientras que solo el porcentaje de G-MDSC disminuyó en la médula ósea (Fig. 6c, g). Estos datos indican que FMT disminuye el número de MDSC en el bazo de ratones sépticos inducidos por LPS.
FMT reduce las propiedades inmunosupresoras de MDSC sobre células T in vivo
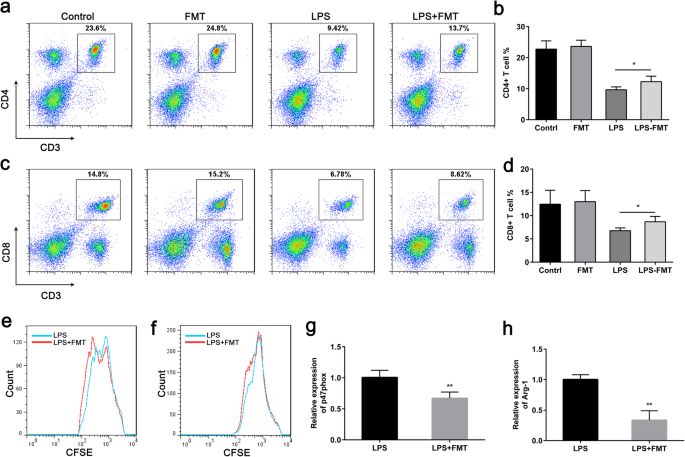
La reducción numérica de múltiples poblaciones de células inmunes, incluyendo células T CD4 y CD8, es una característica mayor de la respuesta inmune adaptativa tras sepsis. Se asocia con mayor riesgo de muerte y otros resultados pobres. Se ha mostrado que las MDSC suprimen la proliferación de células T al deteriorar la expresión de la cadena zeta de células T en pacientes con sepsis. Para evaluar la proporción de linfocitos en sepsis tardía, medimos la proporción de células T CD4 y CD8 en un modelo murino de sepsis. Los resultados mostraron que FMT causó un aumento en células T CD4 y CD8 en bazos de ratones inducidos por LPS (Fig. 7a, b). No hubo diferencias en porcentajes de células T CD4 y CD8 en bazo de ratones tratados con FMT comparados con ratones control (Fig. 7a, b). Para confirmar aún más el papel de MDSC en suprimir la proliferación de células T in vivo, G-MDSC y M-MDSC se aislaron de bazos de ratones desafiados con LPS tratados con vehículo o FMT por MACS y se cocultivaron con células T CD3 a proporción 1:1. Nuestros resultados mostraron que el tratamiento con FMT redujo las funciones inmunosupresoras de células T de tanto G-MDSC como M-MDSC (Fig. 7e, f). Además, también medimos los niveles de expresión de Arg-1 y p47phox en MDSC aisladas de bazos de ratones. Como era de esperar, la expresión génica de Arg-1 y p47phox se redujo significativamente en células CD11b⁺Gr-1⁺ esplénicas aisladas de ratones desafiados con LPS tratados con FMT comparados con ratones desafiados con LPS (Fig. 7g, h). Estos datos indican que FMT disminuyó las funciones inmunosupresoras de MDSC al reducir la producción de Arg-1 y ROS, sugiriendo que FMT puede reducir la inmunosupresión a largo plazo en sepsis tardía.
Discusión
El suplemento de hierro aprobado por FDA, FMT, se ha usado ampliamente como vector de fármacos y agente de contraste en resonancia magnética. Se encontró que FMT inhibe el crecimiento de cáncer al inducir una respuesta inmune proinflamatoria con polarización de macrófagos M1, indicando que FMT tiene funciones inmunomoduladoras. En este estudio, evaluamos el efecto de FMT sobre MDSC comparando el fenotipo y función de MDSC tratadas con FMT con MDSC control no tratadas. Estudios previos han mostrado que las MDSC son capaces de captar nanopartículas magnéticas, y nuestros datos demostraron además que FMT atenúa las funciones inmunosupresoras de MDSC en el bazo mediante regulación a la baja de Arg-1 y ROS. Nuestros datos también indicaron que FMT tiene un efecto directo sobre la diferenciación de MDSC, con aproximadamente una quinta parte de las células diferenciándose uniformemente en macrófagos tras 5 días en experimentos in vitro. Aunque no investigamos el fenotipo de macrófagos expuestos a FMT, hipotetizamos que eran del subtipo proinflamatorio M1. Los resultados demostraron claramente que FMT mejora la diferenciación y maduración de MDSC, y sugiere que esto subyace a la reducción en la población de MDSC que observamos durante sepsis tardía.
La sepsis inicia una respuesta inmune compleja que varía con el tiempo y viene acompañada de respuestas tanto proinflamatorias como antiinflamatorias. Estudios previos han mostrado que la muerte en etapas tempranas de sepsis se debe a inflamación excesiva. Derive y colegas reportaron que la transferencia adoptiva de MDSC de día 10 en ratones sépticos atenuó la producción de citoquinas peritoneales y mejoró la tasa de supervivencia. Más recientemente, Namkoog et al. observaron que la pretratamiento con claritromicina mejoró la supervivencia en un modelo murino de shock inducido por LPS al expandir la población de células CD11b⁺Gr-1⁺. Describieron que las MDSC juegan un papel protector en sepsis, sin embargo, debe notarse que se preocupaban por las etapas tempranas de sepsis. La mayoría de pacientes con sepsis muestran signos rápidos de inmunosupresión profunda, y las muertes en esta fase típicamente se deben a la adquisición de una infección hospitalaria secundaria, a menudo con patógenos oportunistas. La proliferación excesiva de MDSC puede facilitar un síndrome fisiológico de inmunosupresión persistente, causando malos resultados. McClure et al. reportaron que no observaron efectos protectores de transferencia de MDSC una vez que los ratones entraron en el estado inmunosupresor tardío. Previamente habían mostrado que las MDSC se expanden masivamente en médula ósea, bazo y ganglios linfáticos de ratones con procesos sépticos en curso y contribuyen a la supresión de células T inducida por sepsis. Además, Uhel reportó que M-MDSC y G-MDSC contribuyen fuertemente a la disfunción de células T en pacientes con sepsis. Nuestros datos demostraron que FMT disminuyó significativamente el porcentaje de MDSC y atenuó las funciones de MDSC para restaurar el número de células T presentes en ratones durante sepsis tardía. Por tanto, al estudiar el papel de MDSC en sepsis, es crucial distinguir claramente las etapas temprana y tardía de sepsis.
Mohus et al. sugirieron que la deficiencia de hierro se asociaba con mayor riesgo de futuras infecciones de torrente sanguíneo que causan sepsis, indicando que los mecanismos de defensa inmune pueden estar deprimidos comparados con el secuestro bacteriano de hierro en ambientes bajos en hierro. Controversias mostradas en estudios de suplementación de hierro reportaron que la terapia intravenosa de hierro se asociaba con mayor riesgo de infección. Debe notarse que los suplementos de hierro difieren significativamente en sus propiedades fisicoquímicas, lo que les da diferentes propiedades biológicas. Con FMT, un núcleo de hierro está envuelto en una cubierta de carbohidratos, lo que conduce a baja toxicidad, captación lisosomal y degradación. Se ha reportado que FMT no causa hepatotoxicidad en pacientes o modelos animales y se metaboliza típicamente dentro de 2 meses. Nuestros datos mostraron que FMT no aumenta la producción de citoquinas inflamatorias en sepsis temprana, indicando que FMT puede administrarse en sepsis.
Conclusión
Este estudio demostró una novedosa propiedad inmunomoduladora de FMT; sin embargo, se necesitan más estudios para elucidar el mecanismo de supresión de MDSC por FMT. Además, proporcionamos un enfoque terapéutico atractivo para el tratamiento de la inmunosupresión asociada a sepsis y dirigir MDSC puede proporcionar una nueva opción prometedora para restaurar la respuesta inmune durante sepsis.
Disponibilidad de datos y materiales
Los conjuntos de datos usados y/o analizados durante el estudio actual están disponibles del autor correspondiente bajo solicitud razonable.
Abreviaturas
- ALT:
- Alanina aminotransferasa
- Arg1:
- Arginasa 1
- AST:
- Aspartato aminotransferasa
- FMT:
- Ferumoxitol
- G-MDSC/PMN-MDSC:
- MDSC polimorfonucleares/granulocíticas
- HE:
- Hematoxilina-eosina
- IL-1β:
- Interleucina-1β
- iNOS:
- Óxido nítrico sintasa inducible
- LPS:
- Lipopolisacárido
- MCP-1:
- Proteína quimiotáctica de monocitos 1
- MDSC:
- Célula supresora derivada de mieloides
- MHC II:
- Complejo mayor de histocompatibilidad
- M-MDSC:
- MDSC monocíticas
- PBS:
- Solución salina fosfato bufferizada
- ROS:
- Especies reactivas de oxígeno
- TLR:
- Receptor tipo Toll
- TNF-α:
- Factor de necrosis tumoral α
Nanomateriales
- Desmitificando la Compuerta XOR: La Función OR-Exclusivo en Lógica Digital
- Válvula de contrapresión en sistemas de refrigeración: función y importancia en cámaras frigoríficas
- Funciones clave de los fluidos hidráulicos: Garantizar eficiencia y prevenir fallos
- PCBs miniaturizados: Equilibrando forma, función y fiabilidad en la electrónica moderna
- Würth Elektronik lanza chat en vivo para soporte experto instantáneo en múltiples mercados
- Dominando funciones en C: funciones definidas por el usuario y biblioteca estándar
- Ingenieros de IBM desarrollan termómetro nanoscópico, permitiendo mapeo preciso de temperatura en dispositivos cuánticos
- Los nanotubos de carbono logran flexibilidad y velocidad récord en electrónica
- Aprovechando materiales 2D retorcidos para revolucionar la electrónica
- Medición de la firma magnética del núcleo de un solo átomo
- Visualización del carbono disuelto oceánico a escala atómica