



El eje MALAT1/miR-143/VEGFA impulsa el daño endotelial que conduce a aneurisma intracraneal
Resumen
Los roles de algunos ARN no codificantes largos (lncARN) en aneurisma intracraneal (AI) han sido investigados en muchos estudios. El objetivo de este estudio es elucidar el mecanismo del eje de señal lncARN transcripto 1 asociado a metástasis de adenocarcinoma pulmonar (MALAT1)/microARN-143 (miR-143)/factor de crecimiento vascular endotelial-A (VEGFA) en AI inducido por lesión vascular endotelial. Se detectó la expresión de MALAT1, miR-143 y VEGFA en tejidos de AI y tejidos arteriales normales. Se detectó metaloproteinasa de matriz 9 (MMP-9) en tejidos, factor de von Willebrand (vWF) en suero y tejidos, y endotelina-1 (ET-1) en suero. Las ratas modelo de AI se inyectaron con MALAT1 silenciado u sobreexpresado para detectar lesión vascular endotelial. Células endoteliales vasculares de pacientes con AI se aislaron y transfirieron con MALAT1 silenciado u sobreexpresado para verificar los impactos de MALAT1 en viabilidad y apoptosis celular. Las conexiones entre MALAT1, miR-143 y VEGFA se verificaron por predicción en línea, ensayo de actividad luciferasa y ensayos de arrastre de ARN. Se encontró sobreexpresión de MALAT1 y VEGFA y pobre expresión de miR-143 en tejidos de AI. La regulación a la baja de MALAT1 inhibió la presión arterial, la expresión de ET-1, vWF y MMP-9, así como el índice apoptótico de células endoteliales vasculares de ratas con AI. MALAT1 regulado a la baja inhibió apoptosis y promovió viabilidad de células endoteliales vasculares en AI. MALAT1 se unió a miR-143 y miR-143 dirigió VEGFA. Este estudio sugiere que MALAT1 eleva la expresión de VEGFA mediante unión competitiva a miR-143, impulsando así apoptosis y atenuando viabilidad de células endoteliales vasculares en AI.
Introducción
El aneurisma intracraneal (AI), también conocido como aneurisma cerebral, es causado por el aumento de la presión intracraneal inducido por el ensanchamiento anormal local de la cavidad de la arteria cerebral o la pared arterial. El AI es una enfermedad grave con alta mortalidad y morbilidad, y la tasa de prevalencia es aproximadamente 1-3% en la población general. Las principales características clínicas del AI son vasoespasmo cerebral, hemorragia cerebral espontánea y parálisis del nervio oculomotor. Hasta ahora, los factores de riesgo comunes que conducen a la ocurrencia y desarrollo de AI incluyen trastornos hemodinámicos, genéticos, envejecimiento, infecciones y factores congénitos. Los principales tratamientos clínicos, principalmente clipaje quirúrgico y/o embolización endovascular, funcionan para prevenir la ruptura del aneurisma. Sin embargo, el mecanismo detallado subyacente al AI aún permanece por elucidar, reflejando la necesidad urgente de métodos más efectivos en el manejo del AI.
Los ARN no codificantes largos (lncARN) son más largos de 200 nucleótidos y pertenecen a una especie de ARN no codificantes. Se reporta que la expresión del lncARN 1 asociado a arresto de crecimiento está regulada a la baja en AI, y el transcripto 1 asociado a metástasis de adenocarcinoma pulmonar (MALAT1) es un lncARN altamente enriquecido y ampliamente expresado cuya longitud es aproximadamente 8000 nt. MALAT1 ha sido documentado para modular disfunción de músculo liso en aneurisma aórtico torácico. También, un estudio ha presentado la expresión anormal de lncARN y ARN mensajero (ARNm) en AI, y las redes de co-expresión lncARN-ARNm proporcionan pistas para encontrar la patogénesis del AI. MALAT1 ha sido sugerido para avanzar la expresión de osterix y modular la diferenciación osteogénica mediante dirección de la expresión de microARN-143 (miR-143) en células madre mesenquimales de médula ósea humana. Un estudio también ha presentado el papel del clúster miR-143/145 en la reversión de la regulación del factor 5 tipo Krüppel en células de músculo liso y su contractilidad y proliferación en AI. Según Feng et al., la regulación a la baja de miR-143/145 y mayor nivel de metaloproteinasa-9 de matriz (MMP-9) durante la circulación puede estar relacionado con la formación y ruptura de AI. Un análisis ha revelado que los microARN más descontrolados (miR-143 y miR-145) son comunes para dirigirse a genes que son vías de señal, como factor de crecimiento vascular endotelial (VEGF), y otros genes que regulan movimiento o adhesión celular. Un estudio ha revelado la importancia predictiva de variaciones del factor de crecimiento vascular endotelial-A (VEGFA) en AI. Por tanto, buscamos evaluar el mecanismo del eje de señal MALAT1/miR-143/VEGFA en AI inducido por lesión vascular endotelial.
Materiales y métodos
Declaración ética
El estudio fue aprobado por el Comité de Revisión Institucional del Primer Hospital Afiliado de USTC, División de Ciencias de la Vida y Medicina, Universidad de Ciencia y Tecnología de China y siguió los principios de la Declaración de Helsinki. Los participantes proporcionaron consentimiento informado por escrito en este estudio. Todos los experimentos con animales estuvieron en línea con la Guía para el Cuidado y Uso de Animales de Laboratorio de los Institutos Nacionales de Salud. El protocolo fue permitido por el Comité de Ética de Experimentos con Animales del Primer Hospital Afiliado de USTC, División de Ciencias de la Vida y Medicina, Universidad de Ciencia y Tecnología de China.
Sujetos de estudio
Se seleccionaron veinte pacientes con AI (grupo AI) que habían sido diagnosticados por examen de imagen y recibido clipaje neuroquirúrgico en el Primer Hospital Afiliado de USTC, División de Ciencias de la Vida y Medicina, Universidad de Ciencia y Tecnología de China para nuestros experimentos. Había 11 hombres y 9 mujeres de 43,27 ± 6,25 años. Se muestrearon tejidos de AI. Mientras tanto, los tejidos vasculares arteriales corticales temporales del polo temporal se reseccionaron de 20 pacientes (grupo control) con epilepsia de lóbulo temporal causada por esclerosis amigdaloide e hipocampal. Los tejidos reseccionados fueron examinados como tejidos arteriales normales por histopatología después de la operación, y había 13 hombres y 7 mujeres de 44,18 ± 5,91 años. No se reconoció discrepancia significativa en género y edad entre el grupo AI y grupo control (ambos P > 0,05). Muestras de sangre venosa (2 tubos) se obtuvieron de todos los sujetos en ayunas al mismo tiempo en la mañana antes de la operación.
Establecimiento de modelos de rata de AI
Sesenta ratas Sprague-Dawley macho de grado limpio (Hunan SJA Laboratory Animal Co., Ltd., Hunan, China), peso entre 200 y 250 g, se criaron por 7 días (25 ± 2 °C, humedad relativa 65-70%, ciclo 12 h luz/oscuridad, agua y comida libres). A las ratas se les administró elastasa pancreática porcina en la arteria carótida externa y alrededor de la pared de la bifurcación arterial. La arteria carótida externa se ligó con dos líneas quirúrgicas en la rama de la arteria carótida externa aproximadamente 1,5 mm. La arteria carótida externa se cortó entre las dos líneas para formar un aneurisma de carótida interna en el segmento ciego de la arteria carótida externa. Las ratas se alimentaron con 1% salino por 1 semana post-operación. Angiografía cerebral se realizó después de 1 mes y se observó la formación de aneurisma.
Tras el establecimiento de modelos de rata de AI, 50 ratas se distribuyeron aleatoriamente en grupo blanco (n = 10, ratas modeladas tratadas con inyección estereotáctica de 100 μL fosfato salino tamponado (PBS) una vez al día), grupo ARN horquilla corta (sh)-control negativo (NC) (n = 10, ratas modeladas tratadas con inyección estereotáctica de 100 μL sh-MALAT1 NC una vez al día), grupo sh-MALAT1 (n = 10, ratas modeladas tratadas con inyección estereotáctica de 100 μL plásmido sh-MALAT1 una vez al día), grupo sobreexpresión (Oe)-NC (n = 10, ratas modeladas tratadas con inyección estereotáctica de 100 μL plásmido Oe-MALAT1 NC una vez al día), y grupo Oe-MALAT1 (n = 10, ratas modeladas tratadas con inyección estereotáctica de 100 μL plásmido Oe-MALAT1 una vez al día). Los plásmidos anteriores fueron compuestos por Shanghai Genechem Co., Ltd. (Shanghai, China).
Prueba de presión arterial de ratas
La presión arterial de la arteria cola de ratas se midió en la 1ª, 4ª y 12ª semana post-operación. Antes de medir la presión arterial, las ratas se colocaron en un dispositivo de calentamiento a temperatura constante por un momento para prevenir la perturbación de temperatura externa. En segundo lugar, las ratas se mantuvieron quietas por varios minutos en una jaula especial para ratas para prevenir interferencia de actividad. Si la presión arterial varió en gran medida, se determinó dos o tres veces en diferentes momentos para obtener el valor promedio.
Adquisición de tejido de aneurisma
Después de 3 meses, las ratas fueron anestesiadas con pentobarbital sódico al 1% (40 mg/kg) por inyección intraperitoneal para obtener muestras de sangre de las venas. Las ratas fueron eutanasiadas, se abrió el tórax, se intubó el ventrículo izquierdo en la aorta, y se cortó la cava para liberar la sangre. Mientras tanto, 30 mL de suero fisiológico normal conteniendo heparina sódica se utilizó para perfusión cardíaca rápida para eliminar la sangre, y luego se inyectaron 10 mL de 10% poliformaldehído/0,1 M PBS (pH 7,4) en el cerebro. Después de perfusión y fijación, se abrió el cerebro de rata. La circulación arterial en la base del cráneo se observó cuidadosamente, el tejido de aneurisma se separó, y los cambios del aneurisma se observaron bajo microscopio.
Ensayo inmunoabsorbente ligado a enzimas (ELISA)
Los índices séricos relacionados se probaron por kit ELISA. Las muestras de sangre recolectadas se colocaron en termostato a 37 °C por 1 h y centrifugaron a 3000 r/min por 10 min. La detección de expresión de endotelina-1 (ET-1) y factor de von Willebrand (vWF) se realizó según instrucciones del kit (todos los kits comprados de NanJing JianCheng Bioengineering Institute, Jiangsu, China).
Tinción Hematoxilina-Eosina (HE)
Las muestras se fijaron con formalina al 10% por más de 24 h y preservaron en bloques de parafina. Los bloques de parafina se desparafinaron con xileno por 20 min, deshidrataron con serie graduada descendente de alcohol (100%, 95%, 80%, 75%) por 1 min, y tiñeron con hematoxilina por 10 min. Luego, los tejidos se enjuagaron con agua destilada, diferenciaron con etanol de ácido clorhídrico por 30 s, y sumergieron en agua tibia a 50 °C por 5 min. Tiñeron con solución de eosina, los tejidos se enjuagaron con agua destilada, deshidrataron con alcohol 70% y 90%, clarificaron con xileno, y sellaron con goma neutra. La morfología de los tejidos se observó bajo microscopio de alta potencia.
Observación con microscopio electrónico de transmisión
Los tejidos de repuesto se fijaron con dialdehído glutárico al 2,5% y ácido osmítico al 1%, deshidrataron y luego incrustaron con resina Epon812. Las secciones semifinas se tiñeron con azul de toluidina, recortaron, y se hicieron en secciones ultrafinas. Las secciones se tiñeron con acetato de uranilo y citrato de plomo y observaron por microscopio electrónico de transmisión JME-2000EX (Hitachi High-Technologies Co., Ltd., Shanghai, China).
Tinción TUNEL
La tinción TUNEL se usó para observar apoptosis de células endoteliales en ratas AI basándose en kit TUNEL (Roche, Basilea, Suiza). Las secciones de aneurisma de rata preparadas se lavaron dos veces con xileno (5 min/cada) y deshidrataron con serie descendente de alcohol (100%, 95%, 80%, 75%) por 3 veces (5 min/cada). Los tejidos se trataron con solución de proteasa K 20 μg/mL sin DNasa por 15-30 min, gotearon con 50 μL solución de reacción TUNEL por 60 min, y desarrollaron con 50 μL diaminobencidina (DAB) a 25 °C por 10 min. Luego, las secciones se contratiñeron con hematoxilina, deshidrataron con alcohol graduado, clarificaron con xileno, y sellaron con goma neutra. Las secciones se observaron bajo microscopio óptico y el índice apoptótico se calculó.
Aislamiento e identificación de células endoteliales vasculares de aneurisma
El aislamiento de células endoteliales se realizó según el método conducido por Boscolo et al. Los tejidos AI se seccionaron en fragmentos de 3 mm². Los tejidos se incubaron con 0,1% colagenasa B/0,1% dispasa (Roche) por 25 min a 37 °C. Luego, los tejidos pre-desprendidos se trituraron por 2 min con pipeta de 2 mL y filtraron con colador de 100-μm (Thermo Fisher Scientific, Rockford, IL, EE. UU.). Posteriormente, la suspensión celular se centrifugó y luego resuspendió en medio MV2 (incluyendo factores de crecimiento y 20% suero fetal bovino) (PromoCell, Heidelberg, Alemania). Las células se sembraron a 1 × 10⁴ células/mL en frasco de cultivo recubierto con 1 μg/cm² fibronectina. Siguiendo el método descrito por Jackson et al., las células de 80-100% confluencia se separaron con cuentas (Dynabeads M-450 Tosylactived, Oxoid, Hampshire, Reino Unido) recubiertas por Ulex europaeus Aglutinina I (UEA) (Vector Laboratories, Ltd., Peterborough, Reino Unido). Las células endoteliales adheridas a las cuentas recubiertas de lectina se amasaron con concentrador de partículas magnéticas y las células no conjugadas se lavaron con medio basal. Las células positivas UEA se resuspendieron en medio de cultivo y sembraron en frasco de cultivo recubierto de fibronectina para mejorar la adhesión y tasa de crecimiento de las células.
Las células crecieron en MV2 en portaobjetos de cámara recubiertos de fibronectina. Cuando la confluencia celular alcanzó 80-100%, las células se fijaron en acetona a 4 °C y trataron con 1% Triton X-100 por 5 min y luego 0,5% albúmina sérica bovina (BSA) por 15 min. Las células se gotearon con anticuerpo primario contra vWF (1:300, Abcam, Cambridge, MA, EE. UU.) e incubaron por 2 h (NC se realizó en ausencia de anticuerpo primario), gotearon con inmunoglobulina G conjeturada peroxidasa de rábano picante (1:150, Abcam) e incubaron por 30 min. Luego las células se desarrollaron con 50 μL DAB a 25 °C por 5 min, contratiñeron con hematoxilina, diferenciaron con 0,1% ácido clorhídrico, deshidrataron con alcohol, seguido por clarificación con xileno, y sellado con goma neutra. Después de secar, las células se fotografiaron bajo microscopio invertido.
Agrupamiento y transfeción celular
Las células endoteliales vasculares de aneurisma en fase logarítmica se asignaron en 5 grupos: grupo blanco (células endoteliales vasculares de aneurisma sin ningún tratamiento), grupo sh-NC (células endoteliales vasculares de aneurisma transfecionadas con plásmido sh-MALAT1 NC), grupo sh-MALAT1 (células endoteliales vasculares de aneurisma transfecionadas con plásmido sh-MALAT1), grupo Oe-NC (células endoteliales vasculares de aneurisma transfecionadas con plásmido Oe-MALAT1 NC), y grupo Oe-MALAT1 (células endoteliales vasculares de aneurisma transfecionadas con plásmido Oe-MALAT1). Los plásmidos anteriores fueron sintetizados por Genechem. La transfeción celular se realizó según las instrucciones del reactivo lipofectamine™ 2000 (11668-027, Invitrogen, Carlsbad, California, EE. UU.).
Ensayo MTT
Las células endoteliales vasculares de cada grupo se sembraron en placa de 96 pocillos a densidad de 3 × 10⁴ células/mL y cultivaron a 37 °C, 5% CO₂ por 48 h. Cada grupo se estableció con 5 pocillos paralelos, y cada pocillo se apendió con 20 μL solución MTT fresca (5 mg/mL, Sigma, St. Louis, MO, EE. UU.). Después de 4 h de reacción, las células se mezclaron con 200 μL dimetil sulfóxido. Después de disolución completa, el valor de densidad óptica de células en cada grupo se midió por lector de microplacas (BioRad, Hercules, California, EE. UU.) a 490 nm.
Citometría de flujo
La distribución del ciclo celular se probó por tinción yoduro de propidio (PI). Células endoteliales vasculares se desprendieron, centrifugaron, resuspendieron con etanol 75% pre-enfriado, y fijaron durante la noche a -20 °C. Las células se centrifugaron para descartar el sobrenadante. Las células se apendieron en 450 μL PBS, añadieron 100 μL RNasa A, y tiñeron con 400 μL PI a 4 °C por 30 min evitando luz. Un citómetro de flujo (FACSCalibur, Becton, Dickinson and Company, NJ, EE. UU.) se utilizó para probar distribución del ciclo celular.
La apoptosis celular se probó por doble tinción Annexin V/PI. Células endoteliales desprendidas se reunieron y lavaron con PBS 3 veces. Las células se resuspendieron con 100 μL tampón de unión 1× pre-enfriado y mezclaron con 5 μL Annexin y 5 μL PI, respectivamente. La apoptosis celular se probó por citómetro de flujo. Con AnnexinV como eje transversal y PI como eje longitudinal, el cuadrante superior izquierdo representó células lesionadas mecánicamente (AnnexinV⁻/PI⁺), el cuadrante superior derecho para células apoptóticas tardías o necróticas (AnnexinV⁺/PI⁺), el cuadrante inferior izquierdo para células normales negativas (AnnexinV⁻/PI⁻), y el cuadrante inferior derecho para células apoptóticas tempranas (AnnexinV⁺/PI⁻). El total de células apoptóticas (AnnexinV⁺/PI⁻ y AnnexinV⁺/PI⁺) se calculó y expresó como porcentaje.
Reacción en cadena de la polimerasa con transcripción reversa cuantitativa (RT-qPCR)
Los ARN totales en tejidos y células se extrajeron por Trizol (Takara Biotechnology Ltd., Dalian, China), y la concentración y pureza de ARN se determinaron. El proceso de transcripción reversa de ARN en ADN complementario se realizó según las instrucciones del kit de transcripción reversa (K1621, Fermentas, Maryland, NY, EE. UU.). Las secuencias de cebadores de MALAT1, miR-143 y VEGFA (Tabla 1) fueron ideadas y compuestas por Genechem. Para evaluar la expresión de lncARN, microARN o ARNm, RT-qPCR se realizó usando SYBR GreenPCR Master Mix (Takara, Tokyo, Japón) con sistema Roche Real-Time PCR (Roche). U6 se estableció como parámetro interno de miR-143, mientras MALAT1 y VEGFA, con gliceraldehído-3-fosfato deshidrogenasa (GAPDH) como parámetros internos. Los niveles transcripcionales relativos de genes objetivo se calcularon por método 2−ΔΔCt.
Análisis Western Blot
Proteína total de tejidos y células se extrajo. La concentración de proteína se determinó por las instrucciones del kit de ácido bicinconínico (Boster Biological Technology Co. Ltd., Wuhan, Hubei, China). La proteína se separó por electroforesis con gel de poliacrilamida al 10% (Boster Biological Technology). La membrana se transfirió a una membrana de fluoruro de polivinilideno y luego selló con 5% BSA por 1 h. La membrana se incubó con anticuerpo primario contra Ki-67 (1:1000), VEGFA (1:1000), vWF (1:1000), y metaloproteinasa de matriz (MMP)-9 (1:1000, Abcam, Cambridge, Reino Unido), Ciclina D1 (1:1000), Bax (1:1000), y Bcl-2 (1:1000, Santa Cruz Biotechnology, Santa Cruz, California, EE. UU.), y GAPDH (1:2000, Jackson Immuno Research, Grove, Pensilvania, EE. UU.) y con anticuerpo secundario (1:500, Jackson Immuno Research) marcado con peroxidasa de rábano picante. La membrana se obtuvo por sistema de imagen de fluorescencia infrarroja de dos colores Odyssey, y los valores de gris de bandas se midieron por software de análisis de imagen Quantity One.
Ensayo de gen reportero de luciferasa dual
Los sitios de unión de MALAT1 y miR-143 fueron pronosticados y expuestos por sitio web de bioinformática (https://cm.jefferson.edu/rna22/Precomputed/). La relación de unión entre MALAT1 y miR-143 se verificó further por ensayo de gen reportero de luciferasa. El fragmento de gen región 3' no traducida (3'UTR) sintético de MALAT1 se introdujo en vectores reporteros de luciferasa pmiR-Report (Thermo Fisher Scientific) para generar MALAT1 tipo salvaje (MALAT1-WT) por sitio de endonucleasa Bamh1 y Ecor1. La secuencia de mutación complementaria del sitio de la secuencia fue ideada en MALAT1-WT, y el fragmento objetivo se insertó en los vectores reporteros de luciferasa pmiR-Report para producir MALAT1 tipo mutante (MALAT1-MUT) por ligasa T4 DNA después de digestión con endonucleasa de restricción. Los MALAT1-WT y MALAT1-MUT correctamente secuenciados se co-transfecionaron con mimético NC y mimético miR-143 en células endoteliales vasculares. Las células se cosecharon y lizaron 48 h post-transfeción, y la actividad luciferasa se probó por kit de detección luciferasa (BioVision, San Francisco, CA, EE. UU.) con luminómetro (Glomax20/20, Promega, Madison, Wisconsin, EE. UU.).
La relación diana de miR-143 y VEGFA y sitio de unión de miR-143 y VEGFA 3'UTR fueron pronosticados a través de sitio web de bioinformática (https://www.targetscan.org/vert_72/). La secuencia de región promotora VEGFA 3'UTR conteniendo sitio de unión miR-143 fue compuesta y clonada en vectores reporteros de luciferasa pmiR-Report para generar VEGFA-WT. Sobre la base de este reportero, el sitio de unión de VEGFA-WT y miR-143 fue mutado para formar VEGFA-MUT. Reportero VEGFA-WT o VEGFA-MUT se mezcló con mimético NC o mimético miR-143 y luego co-transfecionó en células endoteliales vasculares por 48 h. Después, las células se lizaron y la actividad luciferasa se probó por kit de detección luciferasa.
Ensayo de arrastre de ARN
Para verificar la relación de unión entre miR-143 y MALAT1, se implementó ensayo de arrastre de ARN. Tres secuencias de microARN biotiladas Bio-miR-143-WT, Bio-miR-143-MUT y Bio-miR-NC fueron diseñadas y encomendadas a GenePharma Company (Shanghai, China). Estos oligonucleótidos biotilados se transfecionaron en células por 48 h. Luego, las células se cosecharon e incubaron con lisado celular específico (Ambion, Austin, Texas, EE. UU.) por 10 min. Después, el lisado se incubó con cuentas M-280 estreptavidina pre-recubiertas con RNasa-libre y ARNt levadura (todos de Sigma) a 4 °C por 3 h, luego limpiaron dos veces con solución de lisis fría, tres veces con tampón baja sal, y una vez con solución tampón alta sal. Una sonda antagonista miR-143 se estableció como NC. ARN total se extrajo con Trizol y luego el nivel de enriquecimiento de MALAT1 se probó usando RT-qPCR.
Análisis estadístico
Todos los datos fueron expuestos por software SPSS 21.0 (IBM Corp. Armonk, NY, EE. UU.). Los datos de medición se representaron por media ± desviación estándar. Comparaciones entre dos grupos se realizaron por prueba t de muestras independientes, mientras comparaciones entre múltiples grupos se evaluaron por análisis de varianza unidireccional (ANOVA), y comparaciones pareadas se implementaron por prueba de comparaciones múltiples de Tukey. La relación entre expresión MALAT1 y características clinicopatológicas de AI se determinó por prueba chi-cuadrado. Valor P menor a 0,05 indicó diferencia estadísticamente significativa.
Resultados
MALAT1 y VEGFA están sobreexpresados y miR-143 está regulado a la baja en tejidos AI
La expresión de ET-1 y vWF en suero en grupo AI y grupo control se detectó por ELISA, y los resultados manifestaron que la expresión de ET-1 y vWF aumentó en grupo AI versus grupo control (ambos P < 0,05) (Fig. 1a, b).
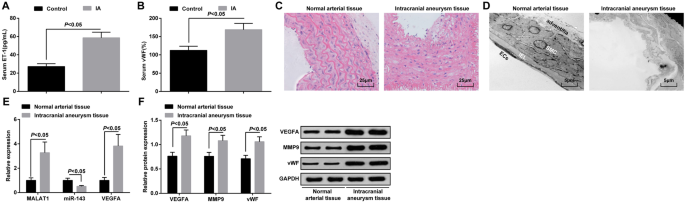
Los cambios patológicos de tejidos AI se observaron a través de tinción HE. No se vio daño obvio en endodermo, células endoteliales y células musculares lisas en tejidos arteriales normales, y las células estaban dispuestas ordenadamente y tenían estructura completa. Los tejidos AI presentaron células endoteliales dañadas, células musculares lisas degeneradas, pared arterial atenuada, fibras elásticas rotas, y células inflamatorias infiltradas (Fig. 1c).
Los cambios ultraestructurales de tejidos AI y arteriales normales se observaron por microscopio electrónico de transmisión. Se encontró que las células endoteliales estaban completas y la estructura de adventicia intacta; no se vio membrana elástica interna rota ni células musculares lisas apoptóticas en tejidos arteriales normales. En tejidos AI, se presentó con degeneración severa de pared de vaso sanguíneo, manifestada principalmente como desaparición de la mayoría de células endoteliales, capa elástica interna severamente rota, células musculares lisas severamente dañadas y degradadas, y desorden de la membrana externa del vaso sanguíneo (Fig. 1d).
RT-qPCR se realizó para determinar expresión ARNm de MALAT1, miR-143 y VEGFA, mientras western blot para expresión proteica VEGFA, MMP-9 y vWF en tejidos AI y arteriales normales. Se demostró que en contraste con tejidos arteriales normales, los niveles de expresión de MALAT1, VEGFA, MMP-9 y vWF estaban aumentados y la expresión de miR-143 degradada en tejidos AI (todos P < 0,05) (Fig. 1e, f).
Grado Hunt-Hess, grado de daño endotelial e historial de tabaquismo se correlacionan con expresión MALAT1 en tejidos AI
A la luz de la expresión mediana de MALAT1, los pacientes se asignaron en dos grupos: grupo baja expresión y grupo alta expresión. La relación entre expresión MALAT1 y características clinicopatológicas de pacientes con AI se analizó. Los resultados sugirieron que grado Hunt-Hess, grado de daño endotelial e historial de tabaquismo estuvieron asociados con expresión MALAT1 (todos P < 0,05), mientras edad, género y modo quirúrgico no se relacionaron con expresión MALAT1 (todos P > 0,05) (Tabla 2).
MALAT1 regulado a la baja reprime la presión arterial, la expresión de ET-1, vWF y MMP-9, así como el índice apoptótico de células endoteliales vasculares de ratas con AI
Como se muestra en Tabla 3, el knockdown de MALAT1 degradó, mientras la restauración de MALAT1 elevó la presión arterial en la 4ª y 12ª semana.
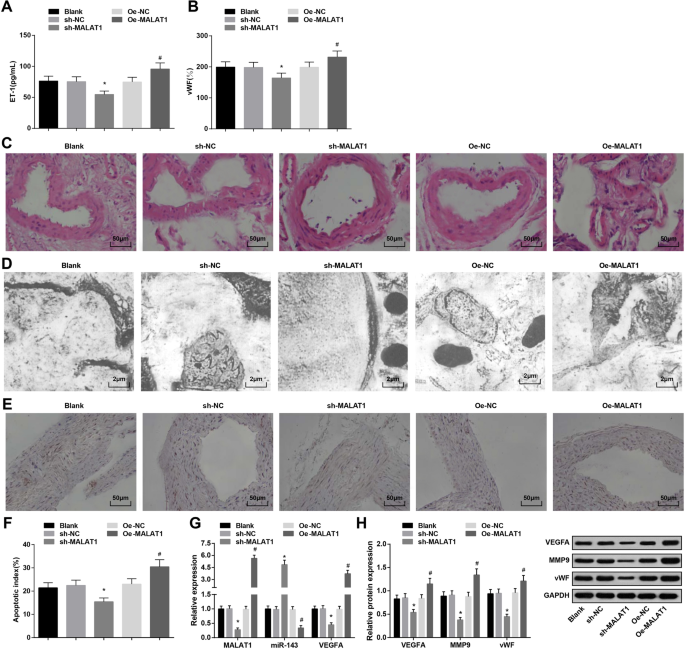
Los cambios patológicos de tejidos AI en cada grupo se inspeccionaron con tinción HE. El grupo blanco, grupo sh-NC y grupo Oe-NC se manifestaron con membrana interna dañada, células endoteliales exfoliadas, células musculares lisas degeneradas, células y capas reducidas, y pared arterial adelgazada. En el grupo sh-MALAT1, el endodermo, células endoteliales, capa de células musculares lisas y capa de membrana externa de arteria intracraneal estaban ligeramente dañadas pero dispuestas ordenadamente. El grupo Oe-MALAT1 mostró capa íntima desaparecida, células endoteliales exfoliadas, fibras elásticas rotas, y células inflamatorias infiltradas (Fig. 2c).
Los tejidos AI de ratas en cada grupo se observaron por microscopio electrónico de transmisión. Se mostró que células endoteliales desnaturalizadas, capa subendotelial desintegrada, capa elástica interna desaparecida, y células musculares lisas disminuidas se presentaron en grupo blanco, grupo sh-NC y grupo Oe-NC. El grupo sh-MALAT1 demostró células endoteliales planas, núcleo oval, y fibras de colágeno aumentadas pero sin capa elástica. El grupo Oe-MALAT1 se caracterizó por células endoteliales desaparecidas y capa elástica separada de la capa muscular, que se desintegró en la luz (Fig. 2d).
El índice apoptótico de células endoteliales vasculares en rata AI se probó por tinción TUNEL. Silenciar MALAT1 redujo el índice apoptótico de células endoteliales vasculares, mientras MALAT1 sobreexpresado exhibió el efecto opuesto (Fig. 2e, f).
Detección RT-qPCR de expresión ARNm MALAT1, miR-143 y VEGFA, y análisis western blot de expresión proteica VEGFA, MMP-9 y vWF en tejidos AI presentaron que la eliminación de MALAT1 deprimió expresión MALAT1, VEGFA, MMP-9 y vWF, y aumentó expresión miR-143. Por el contrario, la elevación de MALAT1 impuso las influencias opuestas en estas expresiones génicas (Fig. 2g, h).
Baja expresión de MALAT1 promueve viabilidad y restringe apoptosis de células endoteliales vasculares en AI
La tinción inmunohistoquímica se empleó para detectar expresión de marcador específico endotelial vWF. Se manifestó que el citoplasma de células endoteliales vasculares AI estaba cubierto con finas partículas marrones, lo que fue positivo, mientras el citoplasma en su grupo NC no tenía partículas marrones. Los resultados confirmaron que las células cultivadas eran células endoteliales (Fig. 3a, b).
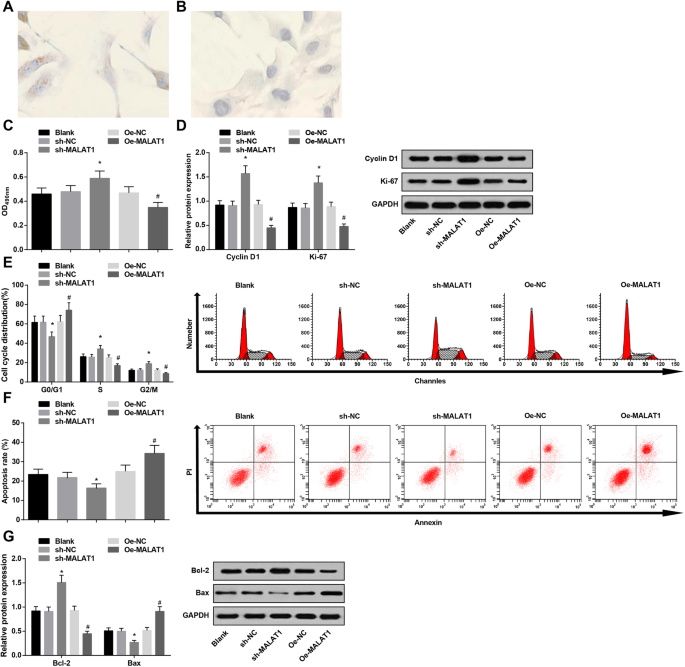
Ensayo MTT, citometría de flujo, junto con análisis western blot se utilizaron para probar viabilidad y apoptosis de células endoteliales vasculares. Se mostró que la disminución de MALAT1 promovió viabilidad de células endoteliales vasculares (aumentó expresión Cyclin D1 y Ki-67) y deprimió apoptosis (disminuyó células fase G0/G1 e aumentó fases S y G2/M, redujo Bax y elevó expresión Bcl-2). Sin embargo, la sobreexpresión de MALAT1 funcionó de manera opuesta a la de disminución de MALAT1 en viabilidad y apoptosis celular (Fig. 3c-g).
miR-143 se une a MALAT1 y VEGFA es gen diana de miR-143
La expresión de MALA1, miR-143 y VEGFA en células endoteliales vasculares de cada grupo se verificó a través de RT-qPCR y análisis western blot. Los resultados presentaron que knockdown MALA1 deprimió expresión MALA1 y VEGFA y aumentó expresión miR-143. Por el contrario, la sobreexpresión MALA1 llevó a incremento en expresión MALAT1 y VEGFA y reducción en expresión miR-143 (Fig. 4a, b).
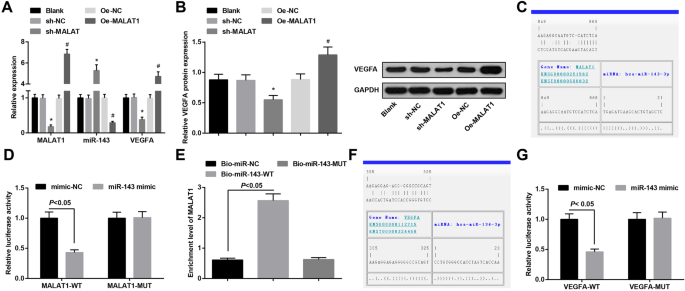
La región de unión específica entre MALAT1 y miR-143 fue adivinada por software de análisis en línea (Fig. 4c). Los resultados de ensayo gen reportero luciferasa dual revelaron que la actividad luciferasa se deterioró en grupo MALAT1-WT + mimético miR-143 versus grupo MALAT1-WT + mimético-NC (P < 0,05). Sin embargo, no hubo diferencia distinta en actividad luciferasa en grupo MALAT1-MUT + mimético miR-143 relativo a grupo MALAT1-MUT + mimético-NC (P > 0,05), indicando que miR-143 se unió específicamente a MALAT1 (Fig. 4d). Los resultados de ensayo arrastre ARN reportaron que el nivel de enriquecimiento MALAT1 en grupo Bio-miR-143-WT fue aumentado comparado a grupo Bio-miR-NC (P < 0,05), pero no hubo diferencia distinta en nivel enriquecimiento MALAT1 en grupo Bio-miR-143-MUT (P > 0,05) (Fig. 4e).
Software bioinformático adivinó relación diana entre miR-143 y VEGFA (Fig. 4f). Los resultados de actividad luciferasa mostraron que la actividad luciferasa relativa reprimió después VEGFA-WT y mimético miR-143 co-transfecionados en células endoteliales vasculares (P < 0,05). Sin embargo, la actividad luciferasa relativa de células endoteliales vasculares no fue afectada por co-transfeción VEGFA-MUT y mimético miR-143 (P > 0,05) (Fig. 4g). Se indicó que VEGFA fue gen diana directo de miR-143.
Discusión
AI es una enfermedad intracraneal grave, que principalmente conduce a hemorragia subaracnoidea. Un estudio previo ha demostrado la participación de redes de ARN endógeno competidor relacionadas con lncARN en AI. También, un estudio reciente ha proporcionado prueba que polimorfismo funcional en región promotora gen miR-143/145 está conectado con riesgo de AI. En estudio conducido por Xu et al., se muestra que sobreexpresión de factores angiogénicos, como VEGFA, puede estar relacionada con formación y ruptura AI. Para explicar el mecanismo molecular de MALAT1 en AI, una serie de ensayos se han conducido y los resultados revelaron que AI inducido por lesión vascular endotelial fue regulado por eje de señal MALAT1/miR-143/VEGFA.
Primero, nuestro estudio ha proporcionado evidencia sustancial que MALAT1 y VEGFA están regulados al alza y miR-143 regulado a la baja en tejidos AI. Un estudio reciente ha presentado que MALAT1 es uno de los lncARN más regulados al alza en proceso de isquemia cerebral. Otro estudio ha presentado que MALAT1 está regulado al alza en células cáncer ovárico e intenta participar en procesos de apoptosis, migración y proliferación de células cáncer ovárico. Un estudio concerniente al perfil de expresión de AI no rota y rota ha demostrado que la expresión de factores angiogénicos como VEGFA está regulada al alza en aneurisma roto. Además, un estudio clínico ha presentado que el clúster miR-143/145 de pacientes AI está regulado a la baja comparado a sujetos sanos. Adicionalmente, se discutió previamente que miR-143/145 participa en varios procesos biológicos asociados con formación aneurisma y está regulado a la baja en pacientes con AI. Todos estos hallazgos ecos más o menos con los resultados de exploración previa.
Excepto los hallazgos mencionados, este estudio también exploró el papel funcional de MALAT1 en AI a través de ensayos ganancia-de-función y pérdida-de-función. Se podría resumir que la regulación a la baja de MALAT1 redujo presión arterial, niveles séricos ET-1, y expresión vWF y MMP-9 en tejidos AI. Se ha sugerido previamente que la regulación a la baja de MALAT1 restringe la regulación al alza del producto de transcripción ET-1 inducido por glucosa. También, se reporta que expresión ectópica MALAT1 es inductora de generación vWF. Otro estudio ha verificado que la depleción MALAT1 en macrófagos derivados médula ósea inhibe expresión MMP-9.
También, experimentos celulares se condujeron para confirmación further de funciones MALAT1 en AI. Los resultados sugirieron que knockdown MALAT1 promovió viabilidad células endoteliales vasculares y deprimió apoptosis en AI. Similarmente, se ha documentado que perturbación MALAT1 mejora arquitectura mural aórtica y retarda crecimiento aneurisma. Suplementario a nuestro hallazgo, hay investigación destacando que pobre expresión MALAT1 induce apoptosis y restringe proliferación células leucemia mieloide aguda. Otro estudio también demostró efectos inhibitorios knockdown MALAT1 en proliferación células cartílago osteoartritis humano. Además, investigación previa generalmente confirma que regulación a la baja MALAT1 puede inducir apoptosis y atenuar proliferación células glioma. Más aún, baja expresión MALAT1 inducida por interferencia ARN promueve apoptosis y suprime proliferación células mieloma múltiple. Colectivamente, estos estudios han explicado el mecanismo molecular MALAT1 en AI en cierta medida.
Adicionalmente, este estudio ha evidenciado que miR-143 se une a MALAT1 y VEGFA es gen diana miR-143. Similarmente, un artículo sostiene que MALAT1 se une directamente a miR-143 y suprime su expresión. Zhu et al. encontraron que MALAT1 ejerce sus roles vía interacción con miR-143 en células carcinoma cervical. Se confirma further que MALAT1 modula indirectamente VEGFA vía miR-200b-3p. Además, otro estudio sugirió que miR-143-3p media efecto ZFPM2 en número de blancos proteicos en sangre, incluyendo VEGFA. Sin embargo, las interacciones entre MALAT1, miR-143 y VEGFA en AI no se han discutido y necesitan further estudio.
Conclusión
De estos resultados, está claro que knockdown MALAT1 deprime apoptosis y promueve viabilidad células endoteliales vasculares en AI modulando eje miR-143/VEGFA. La red de co-expresión sugiere conexión entre MALAT1 y miR-143 con participación VEGFA. Los hallazgos en este estudio parcialmente revelan la patogénesis de inicio y progresión AI, y los blancos estudiados pueden ser un punto de entrada notablemente potencial para revelar patología AI desde otra perspectiva. Limitadamente, further estudios a gran escala se requieren para ilustrar comprehensivamente los mecanismos del eje MALAT1/miR-143/VEGFA en AI.
Disponibilidad de datos y materiales
No aplicable.
Abreviaturas
- lncARN:
- ARN no codificantes largos
- AI:
- Aneurisma intracraneal
- MALAT1:
- Transcripto 1 asociado a metástasis de adenocarcinoma pulmonar
- miR-143:
- MicroARN-143
- VEGFA:
- Factor de crecimiento vascular endotelial-A
- MMP-9:
- Metaloproteinasa de matriz 9
- vWF:
- Factor de von Willebrand
- ET-1:
- Endotelina-1
- sh:
- ARN horquilla corta
- NC:
- Control negativo
- Oe:
- Sobreexpresión
- PBS:
- Fosfato salino tamponado
- HE:
- Hematoxilina-Eosina
- TUNEL:
- Terminal deoxinucleotidil transferasa mediada desoxiuridina trifosfato-biotina nick end-labeling
- UEA:
- Ulex europaeus Aglutinina I
- MTT:
- 3-(4,5-dimetiltiazol-2-il)-2,5-difeniltetrazolio bromuro
- PI:
- Yoduro de propidio
- RT-qPCR:
- Reacción en cadena de la polimerasa con transcripción reversa cuantitativa
- GAPDH:
- Gliceraldehído-3-fosfato deshidrogenasa
- BSA:
- Albúmina sérica bovina
- DAB:
- Diaminobencidina
Nanomateriales
- Semáforos: Ingeniería, Historia e Innovaciones Futuras
- Acoplamiento de Señales: Entendiendo el Ruido CA en Cables Telefónicos
- Tubos Combinados: Fusionando Múltiples Funciones en un Solo Envoltorio de Vidrio
- Sistemas de Señal de Voltaje: Medición Precisa de Niveles de Tanques de Agua
- Sistemas de Señal de Corriente: El Lazo 4–20 mA Explicado
- Señales de CA de Frecuencia Mixta: Acoplamiento, Armónicos e Ideas Prácticas
- Comprender Líneas de Transmisión Largas y Cortas en Ingeniería Eléctrica
- Garantizando la Integridad de Señal en Diseño PCB de Alta Velocidad
- Router CNC 3 ejes vs 4 ejes: Diferencias clave para elegir
- Sensor de radio basado en átomos revela dirección de señal para comunicaciones más limpias
- Dominar el manejo de señales en C++: Gestión segura de interrupciones y terminación limpia del programa